Portrait général
Paranthropus aethiopicus est le plus ancien des australopithèques robustes, présent en Afrique de l’Est entre 2,7 et 2,3 millions d’années environ. C’est la forme qui inaugure une expérience évolutive singulière : un corps d’australopithèque équipé d’un appareil masticateur hypertrophié.
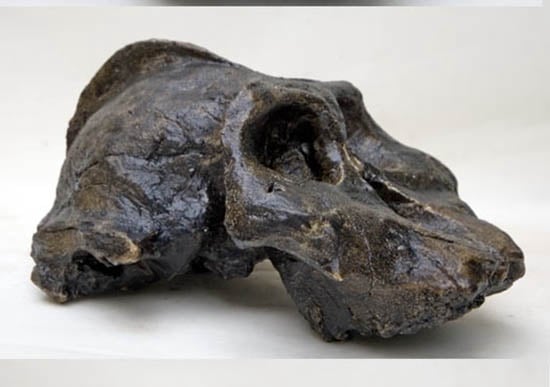
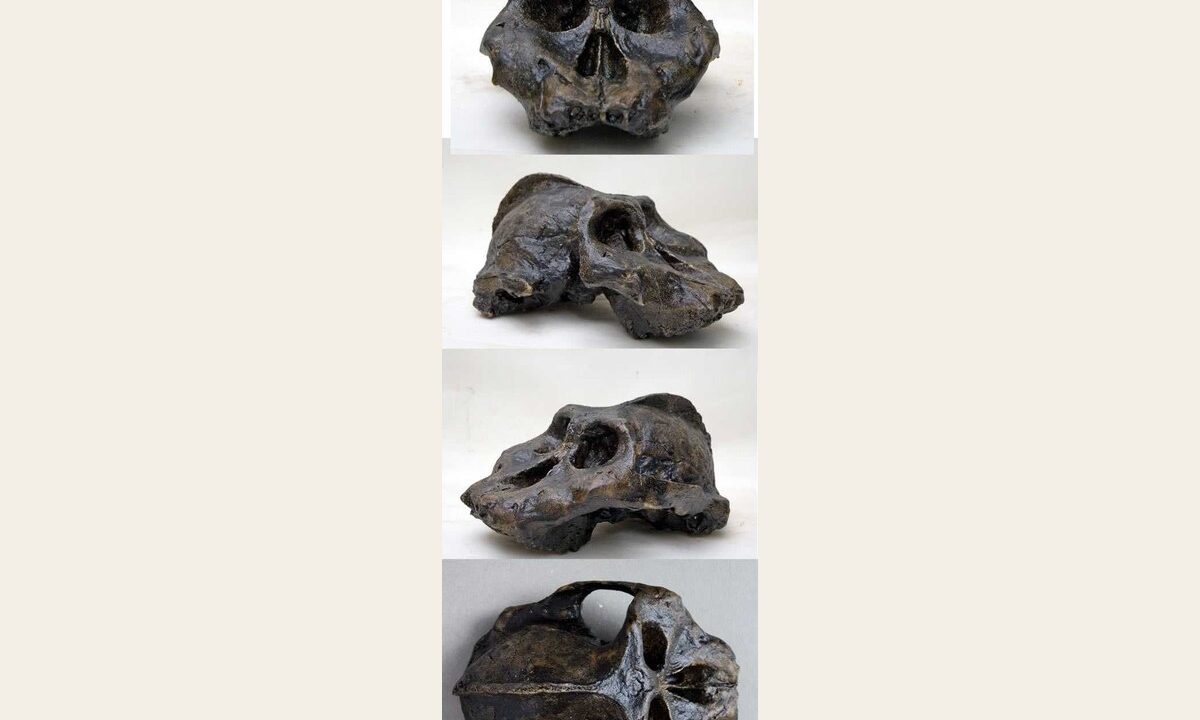
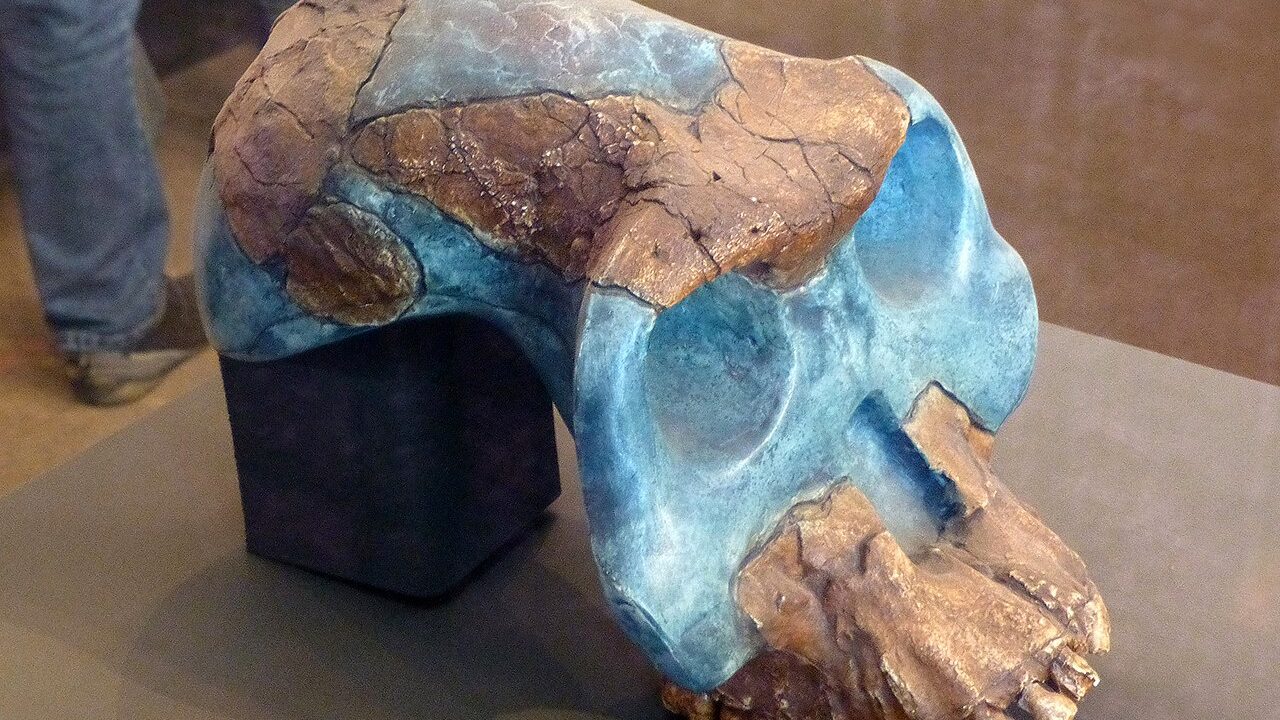
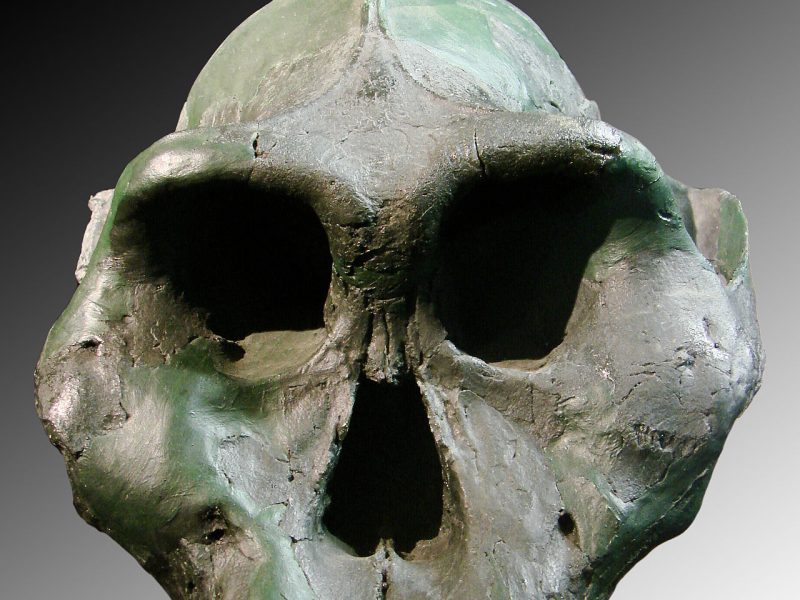
Il est connu du grand public par un fossile spectaculaire, le Crâne noir, dont la couleur bleu-noir vient des sels de manganèse absorbés pendant la fossilisation.
Son nom dit son histoire. Paranthropus, littéralement « à côté de l’homme », est le genre créé par Robert Broom en 1938 pour le paranthrope d’Afrique du Sud. Aethiopicus rappelle l’Éthiopie, où fut trouvé le tout premier fossile de l’espèce. Entre les deux, il y a près de vingt ans de doutes, une découverte retentissante au Kenya et un débat qui n’est toujours pas clos.
L’espèce n’est connue que par une poignée de pièces : un crâne adulte, quelques mandibules, un crâne d’enfant incomplet, une mâchoire supérieure tanzanienne et des dents isolées. C’est peu. Mais ce peu suffit à bousculer l’image d’une évolution humaine en ligne droite.
Découverte dans la vallée de l’Omo
L’histoire commence dans le sud-ouest de l’Éthiopie, dans la basse vallée de l’Omo, le fleuve qui se jette dans le lac Turkana. Le paléontologue français Camille Arambourg y avait déjà prospecté en 1932-1933. En 1967, il revient à la tête de l’équipe française de l’Expédition internationale de l’Omo, aux côtés d’une équipe américaine conduite par F. Clark Howell et d’une équipe kényane menée par Richard Leakey.
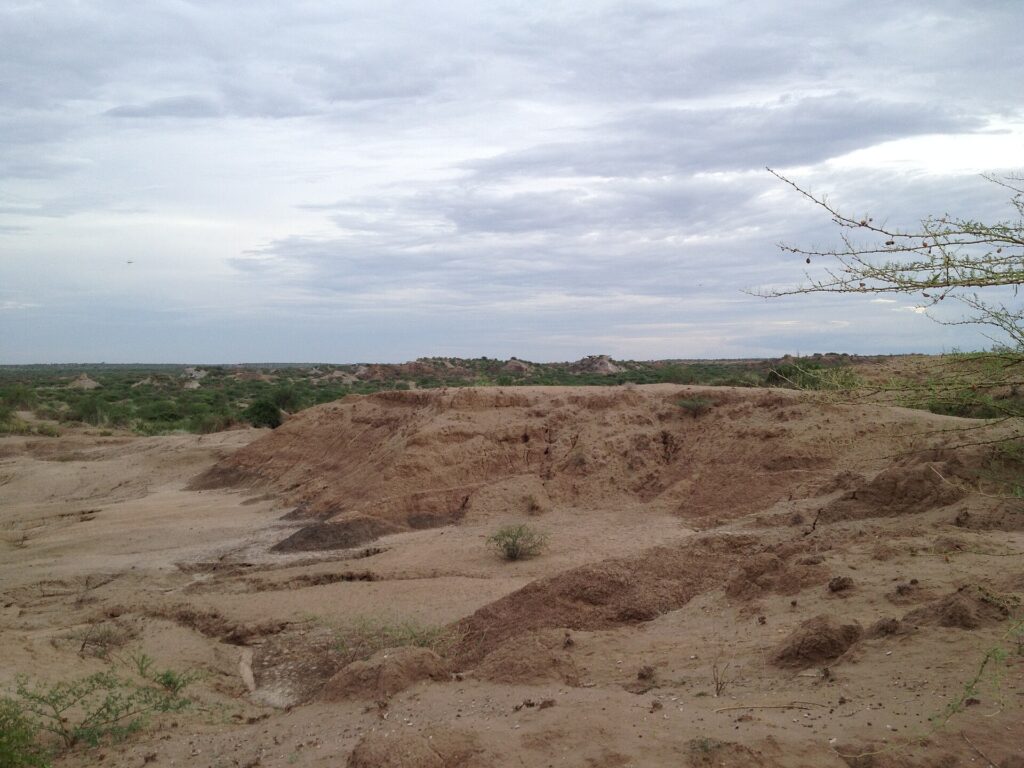
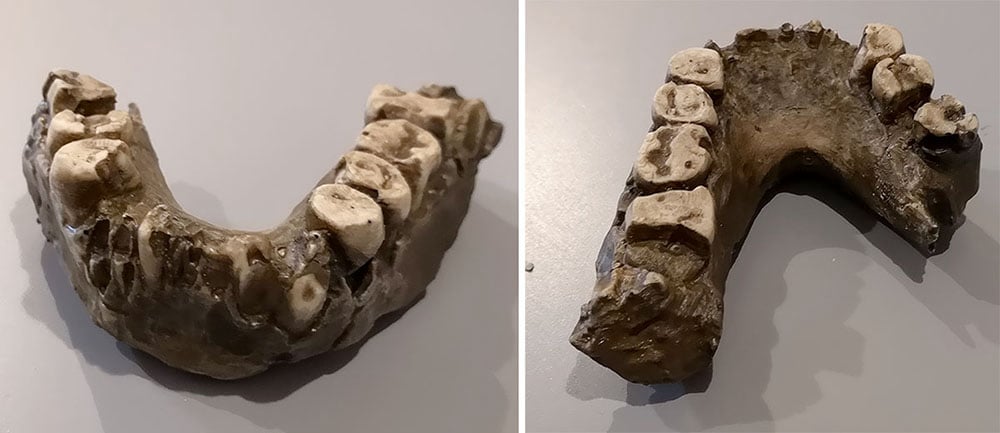
Cette année-là, l’équipe française met au jour, dans la formation de Shungura, une mandibule sans dents, au contour en V très marqué. Arambourg et Yves Coppens la décrivent aussitôt dans les Comptes rendus de l’Académie des sciences sous le nom de Paraustralopithecus aethiopicus. C’est l’holotype de l’espèce, aujourd’hui désigné Omo 18-1967-18. Il provient de niveaux datés d’environ 2,6 millions d’années.
Le fossile est fragmentaire et le nom peine à s’imposer. En 1976, Howell et Coppens eux-mêmes rangent ce matériel parmi les australopithèques graciles. À la mort d’Arambourg, en 1969, Coppens a pris la direction de l’équipe française ; les fouilles de l’Omo se poursuivront jusqu’au milieu des années 1970 et livreront des centaines de restes d’hominines, souvent de simples dents. L’espèce reste longtemps ignorée.
1985 : le Crâne noir sort de terre
Tout change en 1985. Sur la rive ouest du lac Turkana, au Kenya, Alan Walker repère sur le site de Lomekwi un crâne presque complet, d’une couleur inhabituelle. Il est publié en 1986 dans la revue Nature par Walker, Richard Leakey, John Harris et le géologue Frank Brown, sous le numéro KNM-WT 17000, avec un âge d’environ 2,5 millions d’années.
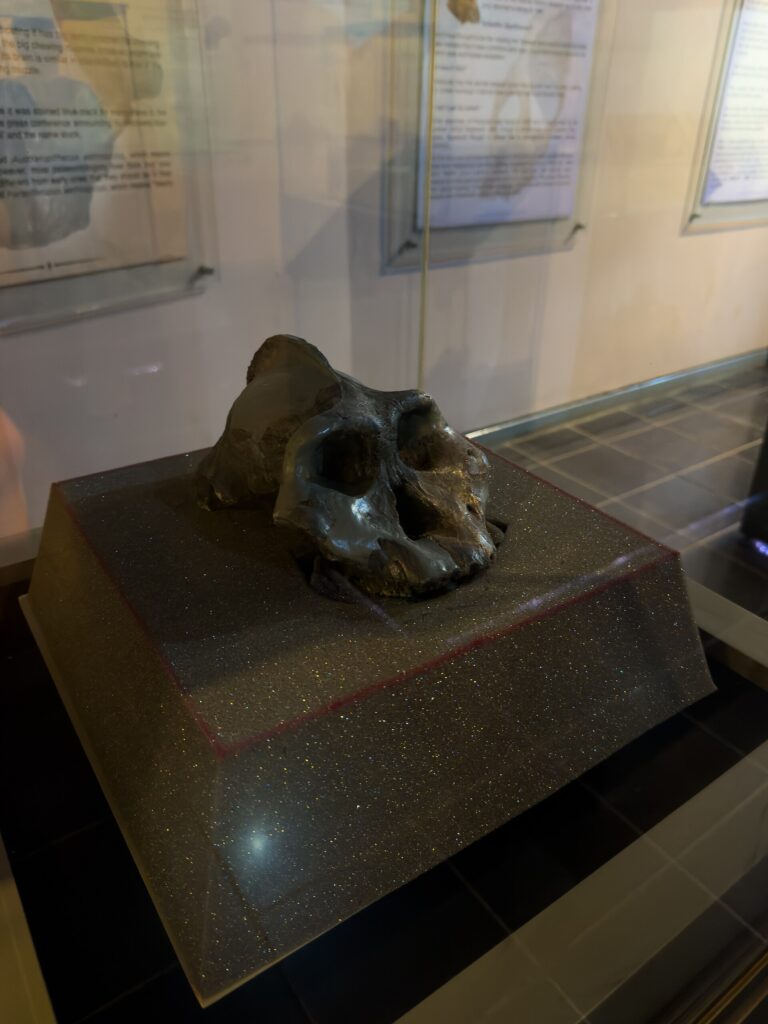
Fait souvent oublié : les auteurs ne le rattachent pas alors à l’espèce de l’Omo, mais le présentent comme un Australopithecus boisei ancien. Leur article souligne déjà un point dérangeant : ce crâne mêle des traits très primitifs à une robustesse extrême, ce qui suggère que les formes robustes ont acquis certains caractères communs en parallèle.
C’est en 1988 que William Kimbel, Tim White et Donald Johanson proposent de rattacher le Crâne noir au nom d’Arambourg et Coppens, sous la forme Australopithecus aethiopicus. Pour eux, l’association de caractères archaïques, proches de ceux d’Australopithecus afarensis, et d’un appareil masticateur déjà robuste justifie une espèce distincte de boisei. La mandibule de l’Omo, oubliée depuis vingt ans, retrouve alors toute son importance, et c’est elle qui donne son nom à l’espèce.
Les fossiles de référence
KNM-WT 17000, le Crâne noir, est la pièce centrale : boîte crânienne, face et base, sans la mandibule et sans la plupart des couronnes dentaires. Les racines des molaires et des prémolaires, conservées dans le palais, suffisent pourtant à montrer que ses dents jugales étaient énormes. C’est le seul crâne adulte connu de l’espèce.
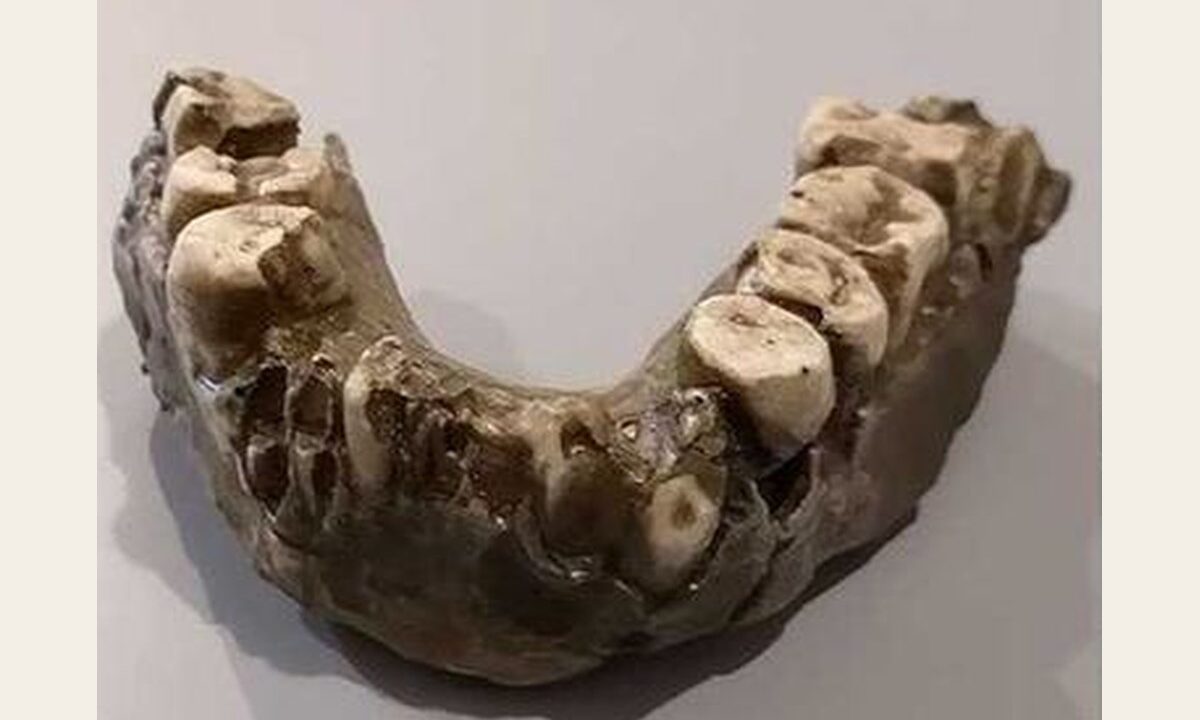
Plusieurs mandibules de l’Omo, dont l’holotype Omo 18-1967-18, et des dents isolées complètent l’échantillon. Aucun os de membre n’est attribué avec certitude à l’espèce, ce qui laisse une inconnue de taille : on ignore comment elle était bâtie sous le cou.
D’autres pièces sont venues s’ajouter au fil des années :
- KNM-WT 16005, une mandibule partielle de Turkana Ouest, publiée avec le Crâne noir en 1986 ; elle conserve plusieurs dents jugales et appartient à un autre individu.
- L 338y-6, une calotte crânienne d’enfant de la formation de Shungura, décrite en 1978 par Yoel Rak et F. Clark Howell comme un jeune boisei, et souvent rattachée aujourd’hui à aethiopicus. Malgré son jeune âge, elle porte déjà des reliefs osseux marqués.
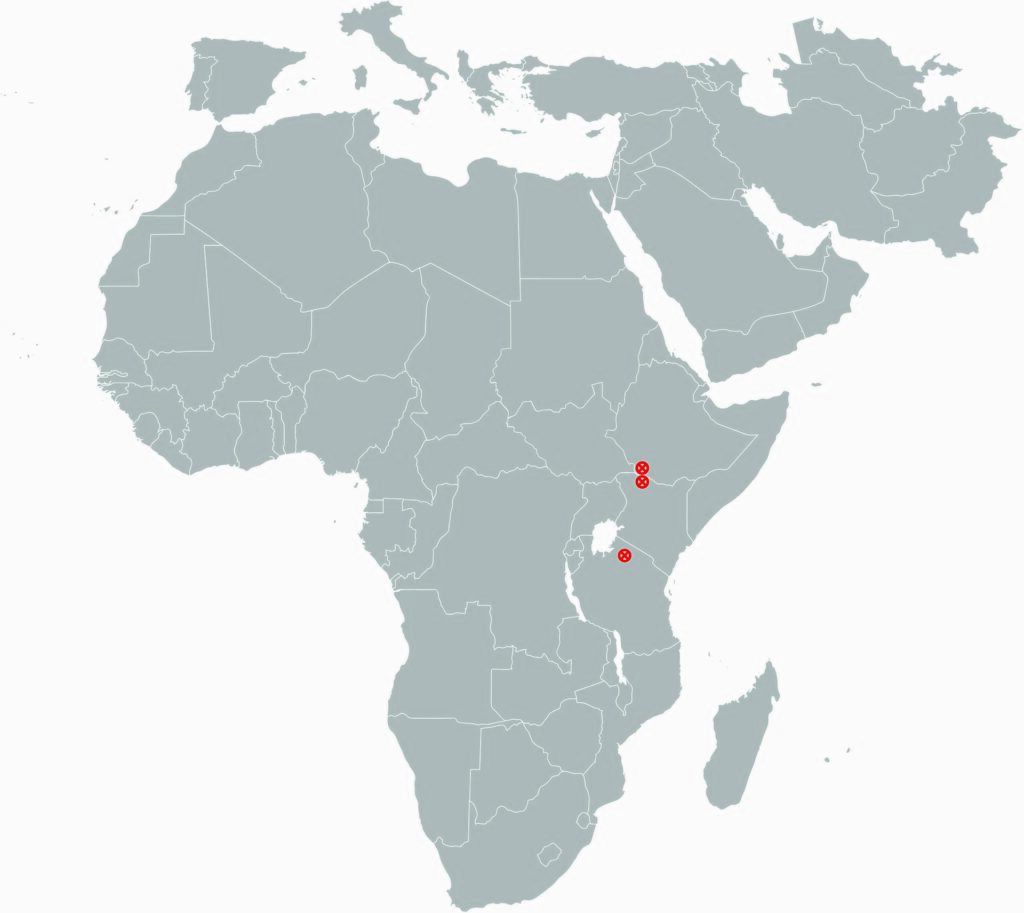
- EP 1500/01, un fragment de maxillaire trouvé à Laetoli, en Tanzanie, dans les Upper Ndolanya Beds, datés d’environ 2,66 millions d’années. Attribué à l’espèce par Terry Harrison, c’est le premier spécimen identifié hors du bassin du Turkana.
- Des dents isolées de Shungura, issues des membres C à F de la formation, rapportées à l’espèce surtout en fonction de leur âge et de leur grande taille.
Anatomie et morphologie
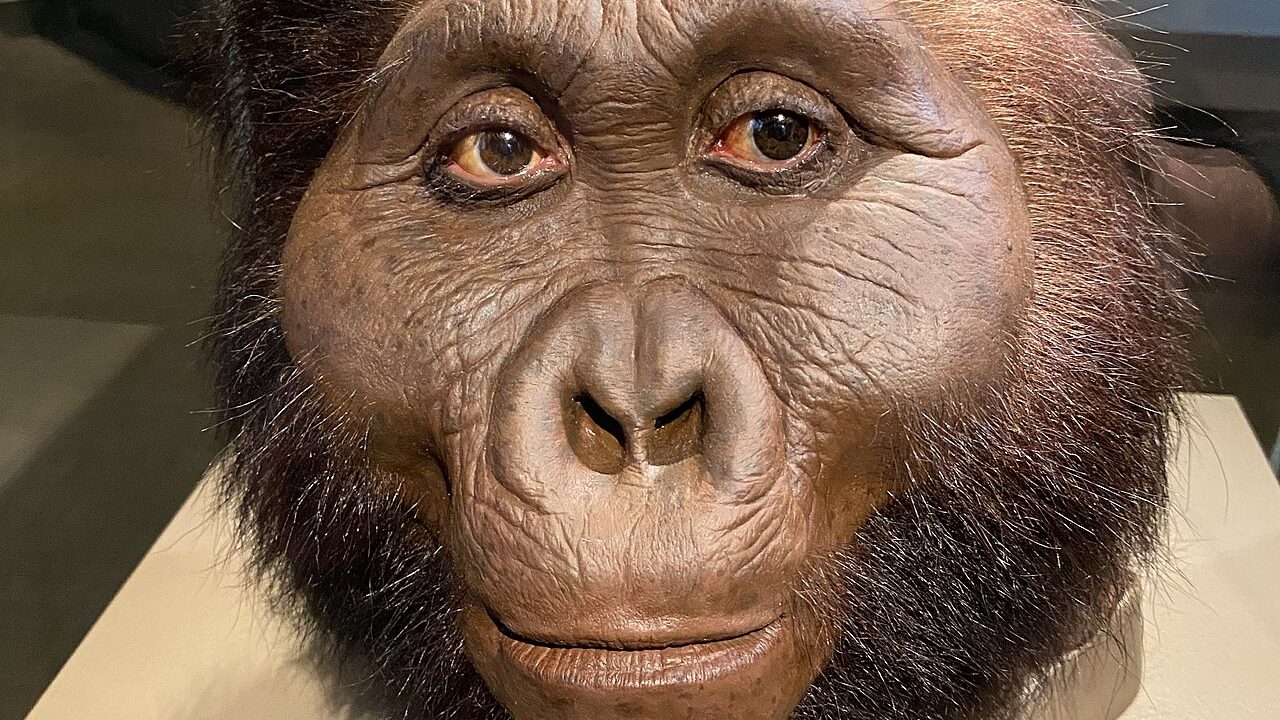
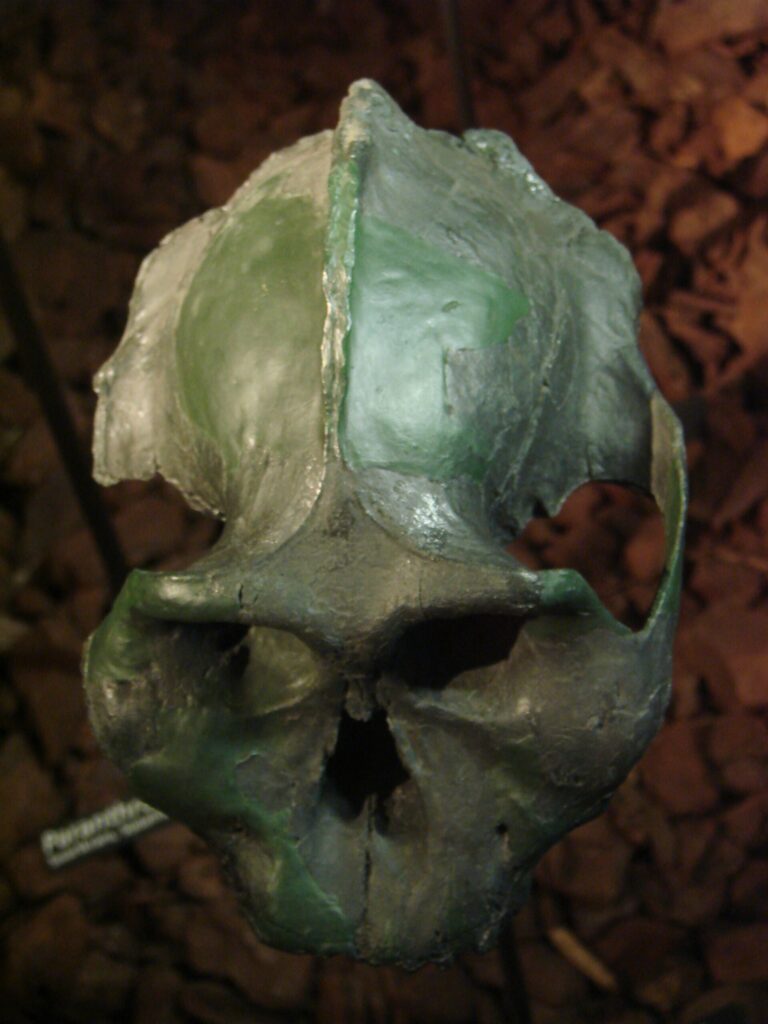
Le Crâne noir associe des caractères que l’on n’attendait pas ensemble. La capacité crânienne est très faible, environ 410 cm³, la plus petite estimée chez les paranthropes et comparable à celle d’un chimpanzé. Le visage est extrêmement projeté vers l’avant, comme chez les australopithèques anciens.
Mais la crête sagittale, l’arête osseuse au sommet du crâne qui sert d’ancrage aux muscles temporaux, est la plus développée de toute la lignée humaine. Les arcades zygomatiques sont largement écartées pour laisser passer des faisceaux musculaires énormes.
Le palais est long et épais, et ses dimensions rejoignent celles des plus grands boisei. À l’inverse, la base du crâne reste peu fléchie et la face ne présente pas l’aplatissement typique des paranthropes plus récents : la mâchoire supérieure avance nettement, un trait hérité. Les alvéoles des incisives suggèrent des dents de devant plus larges que chez boisei, où elles sont réduites.
Autrement dit : un crâne archaïque, doté d’une machine à mâcher déjà poussée à l’extrême. Cette mosaïque est précisément ce qui en fait un fossile clé : elle montre que la robustesse ne s’est pas installée d’un bloc, mais par morceaux.
Comment on le date
Les gisements de l’Omo et du Turkana occidental offrent la meilleure séquence volcanique du continent. Les tufs, cendres consolidées, sont datés à l’argon-argon et identifiés chimiquement, ce qui permet de les suivre d’un site à l’autre sur des centaines de kilomètres.
Le Crâne noir provient du sommet du membre de Lomekwi, dans la formation de Nachukui, juste sous le tuf de Lokalalei, daté d’environ 2,52 millions d’années : son âge de 2,5 millions d’années est l’un des mieux établis du registre.
Côté éthiopien, la formation de Shungura est découpée en membres, de A à L, chacun commençant par un tuf repère. Les fossiles d’aethiopicus s’y répartissent des membres C à F. Le paléomagnétisme vient en appoint : l’inversion du champ magnétique terrestre survenue il y a environ 2,58 millions d’années offre un repère indépendant, enregistré dans les sédiments.
Ce que disent les dents
L’émail dentaire enregistre la signature chimique de l’alimentation. Le rapport entre carbone 13 et carbone 12 distingue les plantes en C3 (arbres, buissons, herbes de milieu frais) des plantes en C4 (graminées tropicales et carex), ainsi que des animaux qui s’en nourrissent.
En 2020, l’équipe de Jonathan Wynn et Enquye Negash a publié dans PNAS les valeurs de 86 dents d’hominines de l’Omo. Résultat : avant 2,37 millions d’années environ, les hominines de la séquence ont une signature dominée par les plantes en C3. Ensuite, la part des ressources en C4 augmente nettement. Ce basculement tombe dans la période d’aethiopicus, et les valeurs élevées attribuées à l’espèce viennent toutes de spécimens postérieurs à cette date.
Deux nuances comptent. Le changement touche tous les hominines de l’Omo, pas seulement les paranthropes. Et il précède la transformation du crâne et des mâchoires : le comportement alimentaire aurait changé avant la morphologie. Quant aux microstries d’usure, l’échantillon d’aethiopicus est trop maigre pour livrer des conclusions solides.
Mode de vie et environnement
Les analyses isotopiques indiquent donc, pour les spécimens les plus récents, une part importante de plantes en C4, graminées et carex de milieu ouvert et de bord de lac. C’est un régime de qualité médiocre mais abondant, qui exige de mâcher longtemps de grandes quantités. Les individus plus anciens semblent avoir eu une alimentation plus variée, encore centrée sur les plantes en C3.
Le bassin du Turkana, à cette époque, alternait épisodes lacustres et phases sèches. Le fleuve Omo y dessinait de vastes plaines d’inondation, bordées de forêts-galeries. L’espèce paraît avoir fréquenté des fourrés et des boisements ouverts, au voisinage de prairies humides.
Ces millénaires coïncident avec l’installation durable des calottes glaciaires de l’hémisphère Nord, vers 2,7 millions d’années. En Afrique de l’Est, les paysages ouverts gagnent du terrain et les faunes de pâtureurs se multiplient. La spécialisation masticatrice des paranthropes est généralement lue comme une réponse à cette variabilité : pouvoir se rabattre sur des ressources dures ou fibreuses quand le reste manque.
Des outils autour de lui ?
Aucun outil n’est attribué avec certitude à aethiopicus. Mais ses fossiles côtoient dans le temps et l’espace les plus anciennes industries de pierre connues.
À Lomekwi même, le site de Lomekwi 3, publié en 2015 par Sonia Harmand et son équipe, a livré des outils taillés vieux d’environ 3,3 millions d’années, bien avant l’espèce. Non loin, à Lokalalei 2C, l’équipe d’Hélène Roche a décrit en 1999 un atelier de taille d’environ 2,34 millions d’années, contemporain des derniers aethiopicus. Dans la vallée de l’Omo, des outils oldowayens apparaissent aussi vers 2,3 millions d’années.
Le cas de Nyayanga, au Kenya, publié en 2023 par Thomas Plummer et ses collègues dans Science, relance la question. Plus de 300 outils oldowayens, datés entre environ 3,0 et 2,6 millions d’années, y voisinent avec des traces de découpe d’hippopotames et deux molaires de Paranthropus. Les dents ne sont pas attribuées à une espèce précise. Elles montrent seulement que des paranthropes fréquentaient ces lieux : qui taillait les pierres reste ouvert.
Place dans la lignée
L’hypothèse la plus répandue fait d’aethiopicus l’ancêtre de Paranthropus boisei, dont il partage la géographie et l’orientation anatomique. Les premiers boisei apparaissent vers 2,3 millions d’années, au moment où aethiopicus disparaît des archives. Lui-même descendrait d’une forme proche d’Australopithecus afarensis.
La question ouverte est celle du lien avec le paranthrope sud-africain, P. robustus : le genre Paranthropus est-il un groupe naturel issu d’un ancêtre commun, ou l’hyper-mastication est-elle apparue deux fois indépendamment, au nord et au sud ? Le débat n’est pas tranché.
Les analyses cladistiques, qui comparent des dizaines de caractères, penchent souvent vers un groupe naturel, comme celle de David Strait, Frederick Grine et Marc Moniz en 1997. D’autres chercheurs estiment que ces caractères, tous liés à la mastication, ont pu évoluer de façon répétée sous des contraintes semblables, ce qui fausserait l’arbre.
Débats et incertitudes
La validité du genre Paranthropus est le principal enjeu. Certains chercheurs préfèrent parler d’Australopithecus aethiopicus, considérant que la robustesse crânienne est une convergence, apparue séparément dans deux lignées d’australopithèques soumises aux mêmes contraintes alimentaires.
L’absence totale de squelette post-crânien empêche par ailleurs toute comparaison de locomotion ou de taille avec les autres espèces.
Le contenu même de l’espèce est discuté. Une mandibule sans dents, un crâne sans mâchoire et des dents isolées ne se superposent jamais : rien ne prouve formellement que l’holotype de l’Omo et le Crâne noir appartiennent à la même espèce. Le rattachement repose sur l’âge, la région et la cohérence de l’ensemble. Certains spécialistes jugent qu’il vaut mieux parler d’un « paranthrope ancien » que d’une espèce bien délimitée.
La durée de l’espèce, enfin, pourrait être plus longue. Certains auteurs envisagent une origine antérieure à 2,7 millions d’années, que les molaires de Nyayanga rendent plausible sans la démontrer.
Idées reçues à corriger
- « Le Crâne noir est le fossile type de l’espèce. » Non : le fossile de référence est la mandibule Omo 18, trouvée dix-huit ans plus tôt en Éthiopie. Le Crâne noir est simplement le spécimen le plus complet.
- « Il a été noirci par le feu. » Non : sa teinte vient des minéraux riches en manganèse du sédiment qui l’enveloppait. Aucun feu n’est en cause.
- « Les paranthropes sont nos ancêtres. » Non : ce sont des cousins. Leur lignée coexiste avec les premiers Homo et s’éteint sans descendance connue, vers 1,2 million d’années.
- « Gros crâne, gros cerveau. » Non : malgré son aspect massif, le Crâne noir abrite un cerveau d’environ 410 cm³. Le volume extérieur tient surtout aux crêtes et aux arcades qui portent les muscles.
Où voir le Crâne noir
Les originaux kényans sont conservés par les Musées nationaux du Kenya, à Nairobi. Le Crâne noir est présenté au Musée national de Nairobi, avec un panneau qui retrace sa découverte. Les fossiles de l’Omo, dont l’holotype, sont conservés en Éthiopie, à Addis-Abeba.
Les moulages, eux, voyagent. On a pu en voir notamment au Muséum d’histoire naturelle de Londres, au musée d’anthropologie de l’Université de Zurich ou au Musée de préhistoire de Valence, en Espagne. Le programme des origines humaines de la Smithsonian Institution et le site African Fossils, porté par les Musées nationaux du Kenya et l’Institut du bassin du Turkana, proposent en outre des modèles 3D consultables en ligne.
Chronologie de la recherche
- 1932-1933 : première mission de Camille Arambourg dans la basse vallée de l’Omo.
- 1967 : lancement de l’Expédition internationale de l’Omo ; découverte de la mandibule Omo 18 dans la formation de Shungura.
- 1967-1968 : Arambourg et Coppens nomment Paraustralopithecus aethiopicus.
- 1976 : Howell et Coppens rangent ce matériel parmi les australopithèques graciles.
- 1978 : Rak et Howell décrivent le crâne juvénile L 338y-6, alors attribué à boisei.
- 1985 : Alan Walker découvre le Crâne noir à Lomekwi, Turkana Ouest.
- 1986 : publication dans Nature, sous le nom d’Australopithecus boisei.
- 1988 : Kimbel, White et Johanson rattachent le crâne à aethiopicus.
- 1999 : publication du site de taille de Lokalalei 2C (environ 2,34 millions d’années).
- Début des années 2000 : attribution du maxillaire EP 1500/01 de Laetoli à l’espèce.
- 2015 : publication des outils de Lomekwi 3 (environ 3,3 millions d’années).
- 2020 : les isotopes de l’Omo situent vers 2,37 millions d’années le virage vers les plantes en C4.
- 2023 : molaires de Paranthropus associées à des outils oldowayens à Nyayanga.
Ce qu’il nous apprend, ce qu’il reste à trouver
Aethiopicus montre qu’à partir de 2,7 millions d’années, deux stratégies divergent nettement. L’une, celle des paranthropes, investit dans le corps : des mâchoires capables de traiter des aliments que personne d’autre ne peut exploiter. L’autre, celle du genre Homo, investit hors du corps, dans l’outil et bientôt dans le feu.
La première a fonctionné pendant plus d’un million d’années. Ce n’est pas une voie de garage : c’est une réussite qui s’est terminée.
Reste à trouver un squelette post-crânien attribuable à l’espèce, une mandibule associée à un crâne, et des restes couvrant l’intervalle 3,0-2,7 millions d’années, qui documenteraient l’apparition de la robustesse. Chaque saison de terrain au Turkana ou dans l’Omo peut changer la donne.
Pour aller plus loin
- Arambourg C. et Coppens Y., description de la mandibule de l’Omo et création de Paraustralopithecus aethiopicus, Comptes rendus de l’Académie des sciences, tome 265 (daté de 1967 ou 1968 selon les bibliographies).
- Rak Y. et Howell F. C., 1978, crâne juvénile de l’Omo (L 338y-6), American Journal of Physical Anthropology, 48.
- Walker A., Leakey R. E., Harris J. M. et Brown F. H., 1986, Nature, 322 : 517-522 (description de KNM-WT 17000).
- Kimbel W. H., White T. D. et Johanson D. C., 1988, implications de KNM-WT 17000 pour l’évolution des australopithèques robustes, dans Grine F. E. (dir.), Evolutionary History of the « Robust » Australopithecines.
- Strait D. S., Grine F. E. et Moniz M. A., 1997, Journal of Human Evolution, réévaluation de la phylogénie des premiers hominines.
- Roche H. et coll., 1999, Nature, site de taille de Lokalalei 2C.
- Harrison T. (dir.), 2011, Paleontology and Geology of Laetoli, volume 2, Springer (dont le maxillaire EP 1500/01).
- Harmand S. et coll., 2015, Nature, outils de Lomekwi 3.
- Wynn J. G., Negash E. M., Bobe R. et coll., 2020, PNAS, 117, chronologie isotopique du passage aux plantes en C4 chez les paranthropes de l’Omo.
- Plummer T. W. et coll., 2023, Science, outils oldowayens et molaires de Paranthropus à Nyayanga.
- Smithsonian Institution, Human Origins Program, fiches Paranthropus aethiopicus et KNM-WT 17000.
Sites & fossiles majeurs
Ouest Turkana (Kenya)