Portrait général
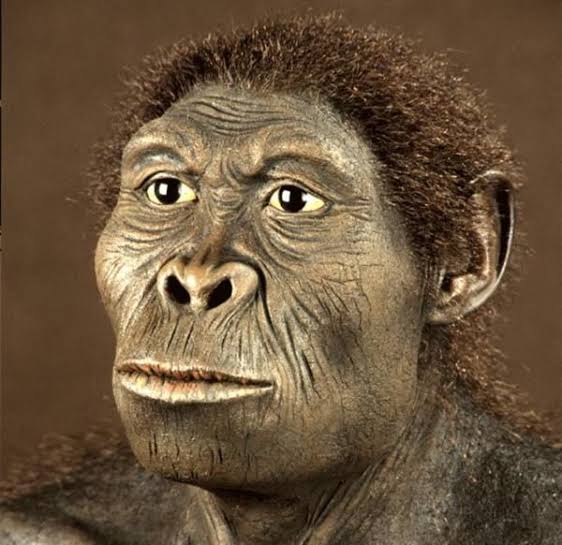
Australopithecus bahrelghazali, surnommé Abel, est un australopithèque tchadien daté d’environ 3,5 millions d’années. Son nom vient du Bahr el Ghazal, « la rivière aux gazelles » en arabe classique, l’ancienne vallée fluviale où il a été trouvé.
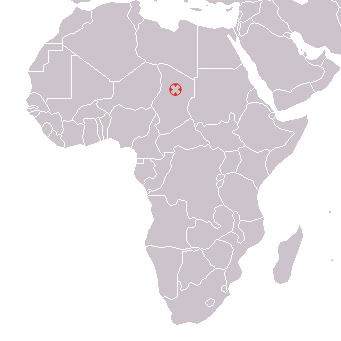
Le Bahr el Ghazal est aujourd’hui une vallée sèche, longue de plusieurs centaines de kilomètres, qui part de la région du lac Tchad vers le nord-est. Lors des phases humides, elle reliait le lac aux grandes dépressions du Djourab et du Bodélé. Abel a vécu au bord de ces eaux, bien avant que le Sahara ne recouvre la région.
Son importance ne tient pas à son anatomie, connue par très peu de restes, mais à sa position géographique : 2 500 kilomètres à l’ouest du Rift est-africain, là où l’on ne cherchait pas.
Découverte
Le fossile est mis au jour le 23 janvier 1995 sur la localité KT 12, à environ 45 kilomètres à l’est de Koro Toro, au Tchad, par la Mission paléoanthropologique franco-tchadienne dirigée par Michel Brunet, en collaboration avec les institutions de recherche tchadiennes. Le surnom rend hommage à Abel Brillanceau, paléontologue de l’équipe et ami de Michel Brunet, mort en 1989 au cours d’une mission de terrain au Cameroun.
Dans un premier temps, à la fin de 1995, l’équipe publie le fossile dans Nature comme une forme proche d’Australopithecus afarensis, l’espèce de Lucy. Puis, en 1996, dans les Comptes rendus de l’Académie des sciences, elle estime que la combinaison de caractères est assez originale pour justifier une espèce nouvelle, Australopithecus bahrelghazali.
C’est la première fois qu’un australopithèque est trouvé hors d’Afrique de l’Est et d’Afrique australe. Six ans plus tard, la même équipe et la même région livreront Toumaï.
Les fossiles de référence
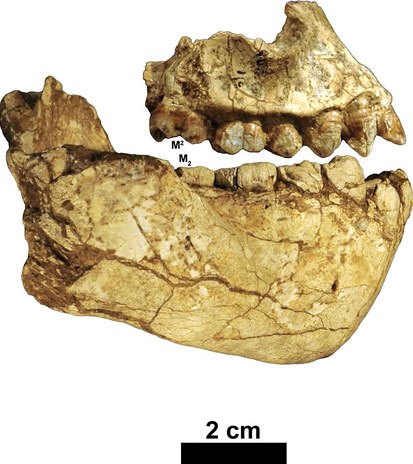
L’holotype, KT 12/H1, est la partie avant d’une mandibule d’adulte portant sept dents : une incisive, les deux canines et les quatre prémolaires. Les alvéoles des autres incisives sont conservées, ce qui permet de restituer la forme de l’arcade.
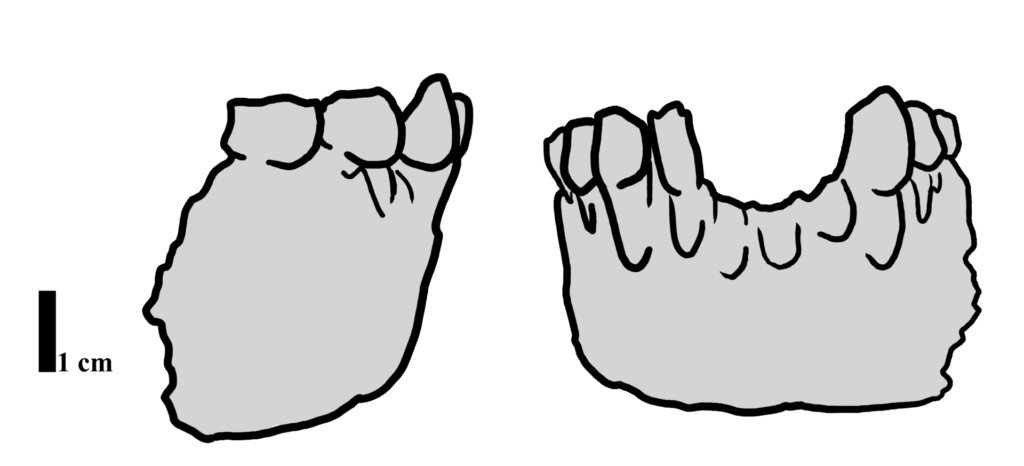
Le paratype, KT 12/H2, est une prémolaire supérieure isolée, trouvée sur le même site le 24 janvier 1996. Deux autres fragments de mâchoire, provenant d’autres localités de la région de Koro Toro, ont été rapportés ensuite à l’espèce.
C’est peu, et il faut le dire : ni crâne, ni membre, ni bassin. Tout ce que l’on avance sur Abel repose sur quelques mâchoires partielles et une poignée de dents.
Anatomie et morphologie
La mandibule présente une symphyse (la soudure des deux moitiés, à l’avant) dont la structure interne diffère de celle d’afarensis : elle est plus verticale, avec un renfort osseux différemment placé. Les prémolaires ont trois racines, caractère jugé primitif, alors que la plupart des australopithèques est-africains n’en ont que deux.
La description de 1996 détaille la combinaison retenue. L’arcade dentaire est parabolique, la face antérieure de la mâchoire presque plane, le corps de hauteur moyenne. Les canines et les incisives sont grandes, avec des couronnes hautes et de longues racines. La quatrième prémolaire inférieure est déjà « molarisée », c’est-à-dire élargie comme une petite molaire.
L’émail est d’épaisseur intermédiaire, et les canines réduites confirment l’appartenance au groupe des hominines plutôt qu’à celui des grands singes fossiles. Les auteurs soulignaient aussi que la symphyse redressée traduit une face moins projetée en avant que chez les autres australopithèques de l’époque.
Ces différences sont réelles mais subtiles. Elles portent sur des détails que l’on sait mesurer, pas sur des caractères spectaculaires, ce qui explique qu’elles ne convainquent pas tout le monde.
Ce qu’une mâchoire peut dire
Comment bâtir une espèce sur une demi-mandibule ? Les paléoanthropologues ne regardent pas seulement la forme générale de l’os, ils en examinent l’intérieur. Dès 1996, l’équipe de Michel Brunet a fait passer KT 12/H1 au scanner médical, pour obtenir des coupes de la symphyse et des racines dentaires sans abîmer le fossile.
Ces coupes permettent de comparer la section de la symphyse à celle des autres hominines : son inclinaison, son épaisseur, la position des renforts osseux qui la consolident à l’intérieur. Chez les grands singes, un « torus » transversal épais renforce la base de la mâchoire. Chez Abel, ce renfort est faible en haut et modéré en bas, et l’axe de la symphyse est presque vertical.
Les racines, elles, se comptent et se classent selon une grille établie en 1991 par Bernard Wood pour les fossiles de Koobi Fora, qui distingue notamment une racine unique, deux racines séparées ou soudées, et trois racines distinctes. Abel tombe dans la dernière catégorie pour ses prémolaires inférieures, et ses prémolaires supérieures ont elles aussi trois racines.
Chacun de ces caractères, pris seul, ne prouve rien. C’est leur combinaison qui fonde la diagnose. Et c’est précisément la question posée par les sceptiques : cette combinaison est-elle propre à une espèce, ou le hasard d’un individu ?
Chercher et dater au Tchad
Le désert du Djourab n’a rien d’un site commode. Il n’y a pas de failles qui découpent la stratigraphie, pas de coupes lisibles, pas de niveaux volcaniques : les fossiles affleurent sur des surfaces de déflation, dégagés par le vent, souvent isolés de tout contexte sédimentaire.
Les campagnes se déroulent à des centaines de kilomètres de toute base, dans des conditions logistiques lourdes, et sur des périodes courtes. Vingt-cinq ans de missions y ont pourtant livré des milliers de fossiles de vertébrés et deux hominines majeurs.
Ce contexte explique une bonne part des incertitudes du dossier : ce n’est pas la méthode qui manque de rigueur, c’est le terrain qui refuse les repères habituels.
Comme pour Toumaï, il n’y a pas de niveaux volcaniques exploitables au Djourab. L’âge repose sur la biochronologie, la comparaison de la faune associée avec des ensembles est-africains datés, complétée par des mesures au béryllium 10.
En 1996, l’équipe jugeait la faune de Koro Toro comparable à celle d’Hadar, en Éthiopie, ce qui plaçait Abel entre 3,5 et 3 millions d’années. En 2008, Anne-Élisabeth Lebatard et ses collègues ont appliqué une méthode nouvelle, fondée sur le rapport de deux isotopes du béryllium piégés dans une argile du niveau fossilifère. Elle a donné 3,58 millions d’années, avec une marge de plus ou moins 270 000 ans.
La fourchette de 3,6 à 3,0 millions d’années est donc moins serrée que celle des sites éthiopiens. C’est une contrainte du terrain, pas un défaut de méthode.
Ce que disent les dents
L’analyse isotopique de l’émail a livré un résultat notable : Abel consommait une forte proportion de plantes en C4, c’est-à-dire des graminées et des laîches de milieu ouvert, ou des animaux qui en mangent. À 3,5 millions d’années, c’est précoce.
L’étude, publiée en 2012 dans les PNAS par Julia Lee-Thorp et ses collègues, porte sur les dents de trois individus provenant de deux localités de Koro Toro. Le carbone de leur émail indique que 55 à 80 % de leur alimentation provenait de ressources en C4. C’est davantage que chez afarensis à la même époque, et comparable à ce que l’on observera bien plus tard chez Paranthropus boisei.
Le résultat pose une énigme. Les dents d’Abel n’ont rien de spécialisé pour broyer des herbes coriaces. Dans un commentaire publié en même temps, l’anthropologue Nathaniel Dominy a proposé une piste : les laîches de bord de lac, comme le papyrus, dont les tiges tendres et les tubercules riches en amidon pouvaient être consommés sans mâchoires de broyeur. L’hypothèse est séduisante mais pas démontrée.
Mode de vie et environnement
La faune associée (poissons, crocodiles, hippopotames, éléphants) décrit un vaste système fluvio-lacustre bordé de prairies. Un environnement très différent des forêts-galeries d’Aramis.
Plusieurs espèces trouvées avec Abel, dont un éléphant et un rhinocéros connus aussi en Afrique de l’Est, ainsi que des poissons d’eau libre, suggèrent que ces lacs communiquaient avec les grands réseaux fluviaux du nord-est de l’Afrique. Les auteurs ont proposé une image : des étendues d’eau peu profondes, des marais, des prairies inondables et quelques arbres, un paysage qui évoquerait le delta de l’Okavango, au Botswana.
Pour un hominine de petite taille, ce milieu offrait à la fois de l’eau, des plantes de rivage abondantes et des refuges arborés. Il exposait aussi aux crocodiles et aux grands carnivores, présents dans la même faune.
Place dans la lignée
Si l’espèce est valide, elle représente un rameau ouest-africain contemporain d’afarensis. Si elle ne l’est pas, elle documente simplement l’extension géographique de ce dernier.
En 1996, Michel Brunet et ses collègues allaient plus loin : ils voyaient dans certains traits d’Abel, la molarisation des prémolaires et le modelé de la symphyse, des caractères qui annoncent ceux du genre Homo. Cette hypothèse est restée isolée. D’autres auteurs, comme Camilo Cela-Conde et Francisco Ayala en 2003, ont proposé de regrouper les australopithèques anciens dans un genre distinct, Praeanthropus, qui inclurait Abel.
Dans les deux cas, la conclusion est la même et elle est importante : des australopithèques vivaient au Tchad, au milieu du continent, et non dans le seul couloir du Rift.
Un buisson d’australopithèques
Abel n’est pas un cas isolé. Vers 3,5 millions d’années, l’Afrique de l’Est abritait déjà plusieurs formes contemporaines : Australopithecus afarensis, de la Tanzanie à l’Éthiopie ; Kenyanthropus platyops, décrit en 2001 à l’ouest du lac Turkana ; et Australopithecus deyiremeda, décrit en 2015 dans la région de Woranso-Mille, en Éthiopie, entre 3,5 et 3,3 millions d’années.
La validité de chacune de ces espèces est discutée. Mais leur accumulation dessine un tableau différent de la lignée unique longtemps enseignée : au milieu du Pliocène, plusieurs hominines coexistaient, dans des régions et sans doute des niches écologiques différentes. Abel, s’il est une espèce à part, en serait la branche la plus occidentale.
Débats et incertitudes
La validité de l’espèce est la question centrale, et une majorité de spécialistes penche pour l’intégrer à afarensis. L’argument est simple : les différences observées entrent dans la variabilité connue d’une espèce très étendue dans le temps et l’espace. Le nombre de racines des prémolaires, par exemple, varie chez afarensis lui-même.
Les défenseurs d’Abel répondent que l’éloignement géographique rend une divergence plausible, et que juger sur une seule mandibule impose la prudence dans les deux sens.
Ce qu’il nous apprend
Abel a changé la carte. Avant lui, la paléoanthropologie cherchait là où elle avait déjà trouvé : le Rift, dont les failles exposent commodément des sédiments anciens. Le Tchad n’offre pas cet avantage, mais il a livré deux fossiles majeurs en six ans.
Il a aussi contribué à ruiner un scénario très populaire dans les années 1980, celui de « l’East Side Story » défendu par Yves Coppens : la formation du Rift aurait isolé à l’ouest les grands singes dans la forêt et à l’est les préhumains dans la savane. Un australopithèque à 2 500 kilomètres à l’ouest du Rift n’entre pas dans ce schéma. La note de 1996, présentée à l’Académie des sciences par Yves Coppens lui-même, conclut d’ailleurs que la découverte oblige à « réexaminer ce scénario ».
La leçon vaut au-delà du cas : l’aire connue d’un fossile reflète d’abord l’aire où l’on a cherché.
Où voir Abel
Après leur étude à l’université de Poitiers, les fossiles de Koro Toro ont été déposés au Centre national d’appui à la recherche (CNAR) de N’Djamena, qui conserve l’ensemble des découvertes de la mission franco-tchadienne. La mandibule n’est pas exposée en permanence.
Contrairement à Toumaï, Abel est rarement présenté en moulage dans les musées. La meilleure façon de le « voir » reste les publications scientifiques, qui en donnent des photographies, des dessins et des coupes au scanner.
Chronologie de la recherche
- 1989 : mort d’Abel Brillanceau au Cameroun, lors d’une mission de terrain.
- 23 janvier 1995 : découverte de la mandibule KT 12/H1 près de Koro Toro.
- Novembre 1995 : première publication dans Nature, comme forme proche d’afarensis.
- 24 janvier 1996 : découverte de la prémolaire supérieure KT 12/H2.
- 1996 : description de l’espèce Australopithecus bahrelghazali.
- 2001 : la même mission découvre Toumaï dans le Djourab.
- 2008 : datation au béryllium 10, à 3,58 millions d’années.
- 2012 : les isotopes du carbone révèlent un régime riche en plantes C4.
Ce qu’il reste à trouver
Un crâne ou un membre suffirait à trancher la question de l’espèce. Le Djourab en recèle probablement, mais les conditions de fouille y sont difficiles et les campagnes rares.
Il faudrait aussi des sites intermédiaires, entre le Tchad et le Rift, pour savoir si les australopithèques occupaient tout le Sahel ou seulement des bassins lacustres isolés.
Pour aller plus loin
- Brunet M. et al. (1995), « The first australopithecine 2,500 kilometres west of the Rift Valley (Chad) », Nature, 378.
- Brunet M. et al. (1996), « Australopithecus bahrelghazali, une nouvelle espèce d’Hominidé ancien de la région de Koro Toro (Tchad) », Comptes rendus de l’Académie des sciences, 322.
- Cela-Conde C. J., Ayala F. J. (2003), « Genera of the human lineage », PNAS, 100.
- Lebatard A.-E. et al. (2008), « Cosmogenic nuclide dating of Sahelanthropus tchadensis and Australopithecus bahrelghazali », PNAS, 105.
- Lee-Thorp J. et al. (2012), « Isotopic evidence for an early shift to C4 resources by Pliocene hominins in Chad », PNAS, 109.
- Dominy N. J. (2012), « Hominins living on the sedge », PNAS, 109.
- Haile-Selassie Y. et al. (2015), « New species from Ethiopia further expands Middle Pliocene hominin diversity », Nature, 521.
- Australian Museum, fiche « Australopithecus bahrelghazali ».
Sites & fossiles majeurs
Koro Toro (Tchad)