Portrait général
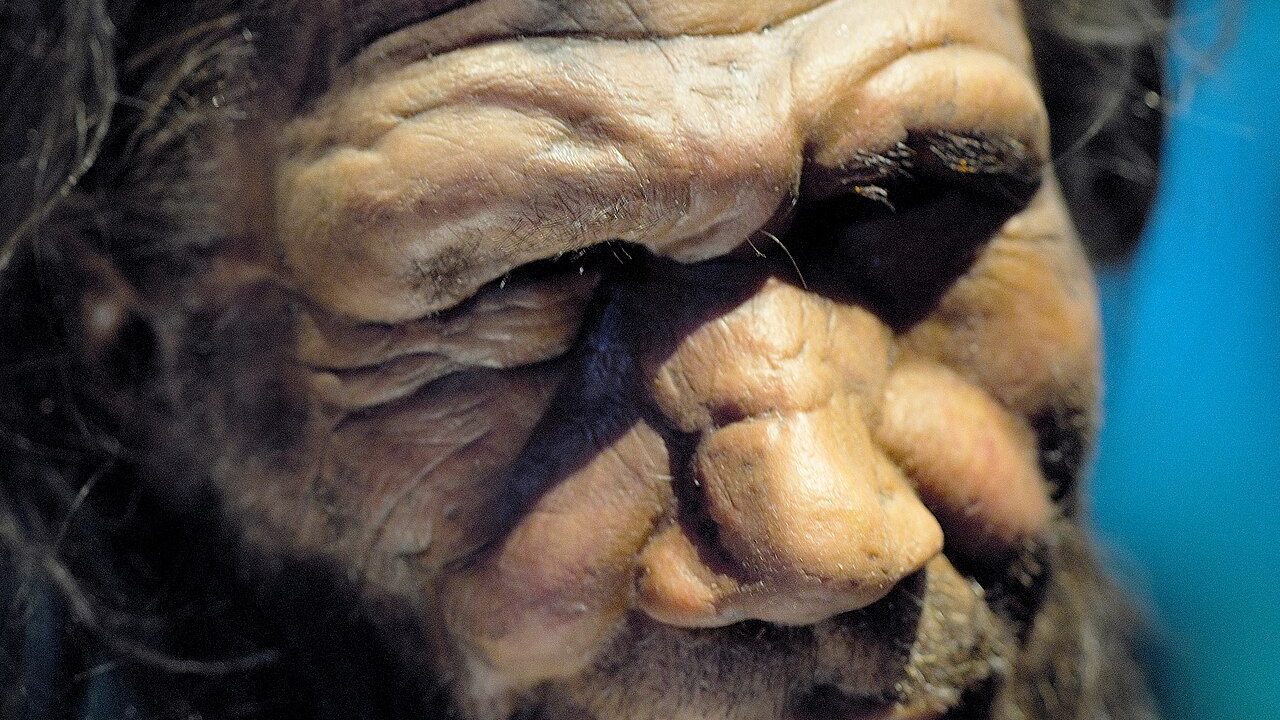
Homo heidelbergensis désigne les populations humaines du Pléistocène moyen, entre environ 700 000 et 300 000 ans, en Europe et en Afrique. Grands, robustes, dotés d’un cerveau presque aussi volumineux que le nôtre, ce sont des chasseurs de grand gibier, et l’on a longtemps cru posséder leurs armes.
C’est aussi le nom le plus discuté de la classification humaine. On l’a longtemps employé comme une case commode où ranger tout ce qui n’était ni erectus, ni Néandertal, ni sapiens.
Cette fiche raconte donc deux histoires à la fois : celle de populations bien réelles, qui ont maîtrisé le feu et la chasse en Europe tempérée, et celle d’un nom qui se défait à mesure que les données s’accumulent.
Un monde rythmé par les glaciations
Le Pléistocène moyen commence il y a environ 774 000 ans, avec la dernière inversion du champ magnétique terrestre, et s’achève vers 129 000 ans. C’est une période de grands contrastes : entre 1,2 million et 700 000 ans environ, les cycles climatiques s’allongent et s’amplifient, jusqu’à durer une centaine de milliers d’années chacun.
En Europe, de longues glaciations, où les calottes descendaient jusqu’aux abords de Londres et à l’Allemagne du Nord, alternaient avec des interglaciaires aussi doux, parfois plus, qu’aujourd’hui. Éléphants à défenses droites et rhinocéros de forêt fréquentaient alors l’Europe du Nord-Ouest ; pendant les phases froides, mammouths, rennes et bœufs musqués les remplaçaient.
L’Afrique connaissait, de son côté, des alternances de phases humides et arides, qui ouvraient et refermaient tour à tour les couloirs du Sahara et du Levant. Les populations humaines ont suivi ces pulsations : s’étendre quand le climat le permettait, se replier, parfois disparaître localement.
Découverte
Le 21 octobre 1907, dans la sablière de Grafenrain, à Mauer, près de Heidelberg, un ouvrier nommé Daniel Hartmann met au jour une mandibule à environ vingt-quatre mètres de profondeur. Elle est décrite l’année suivante par Otto Schoetensack, qui crée pour elle l’espèce Homo heidelbergensis.
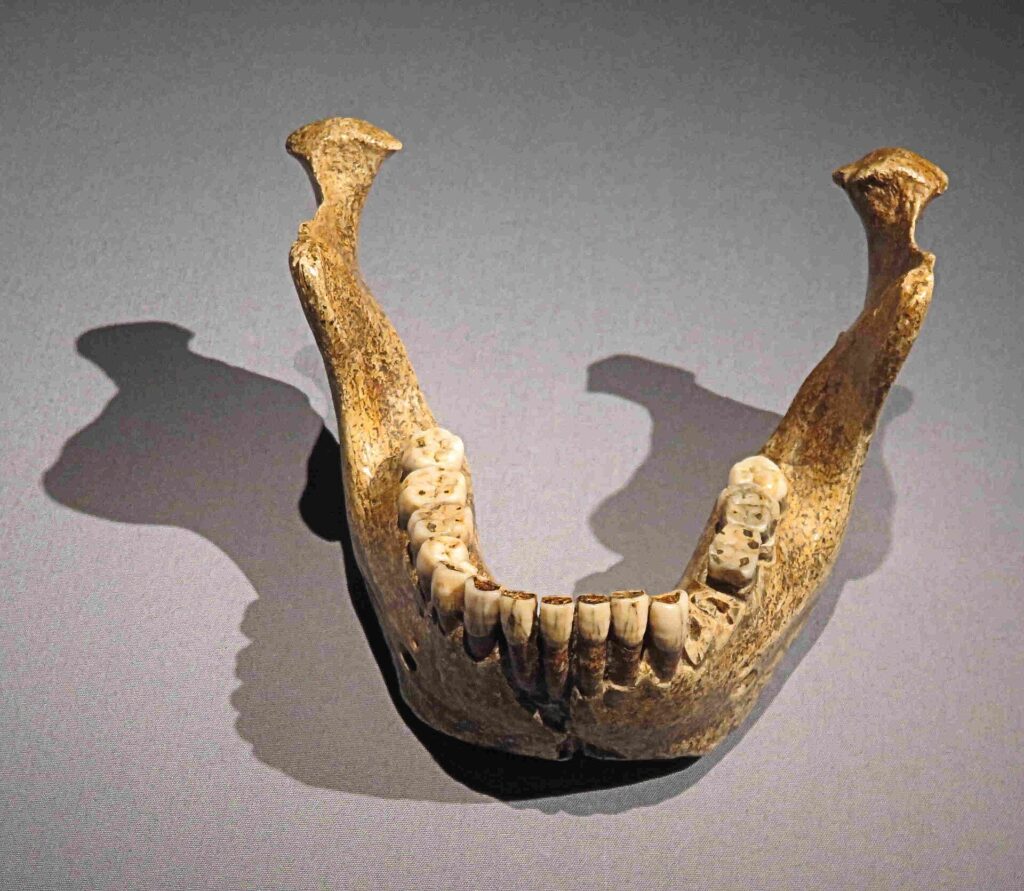
La mâchoire est massive, sans menton, mais porte des dents de dimensions modernes. Elle est aujourd’hui datée de 609 000 ans (à 40 000 ans près), le plus ancien reste humain d’Allemagne. L’original est conservé à l’université de Heidelberg.
Pendant plus d’un demi-siècle, cette mandibule est restée presque seule à porter le nom. C’est à partir des années 1960 et 1970, avec Petralona, Arago, Bodo et la réétude de Kabwe, que le nom s’est étendu à un ensemble de fossiles européens et africains.
Les fossiles de référence
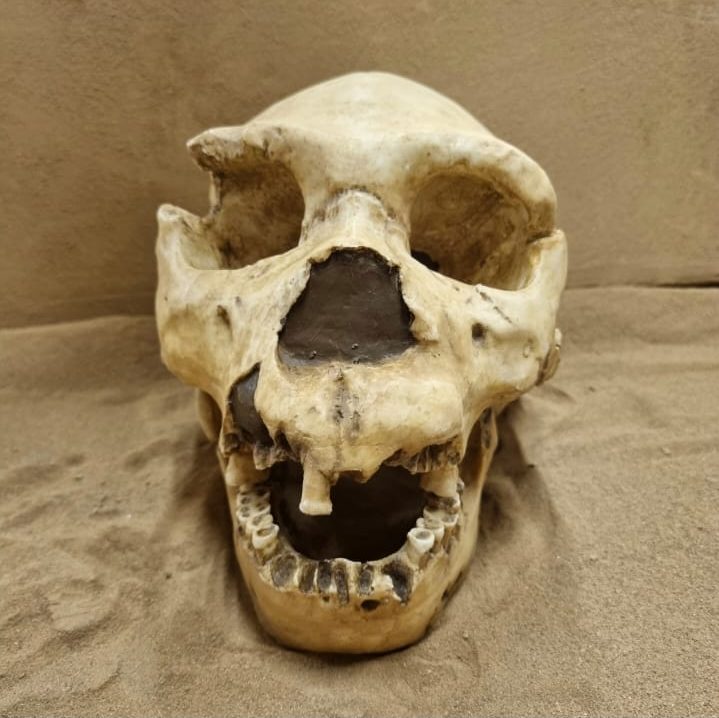
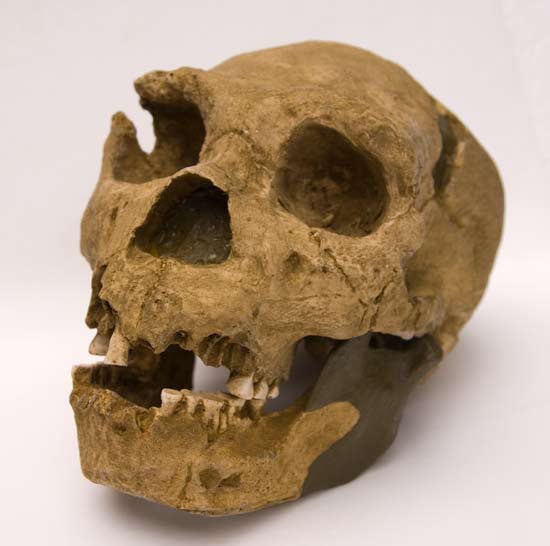
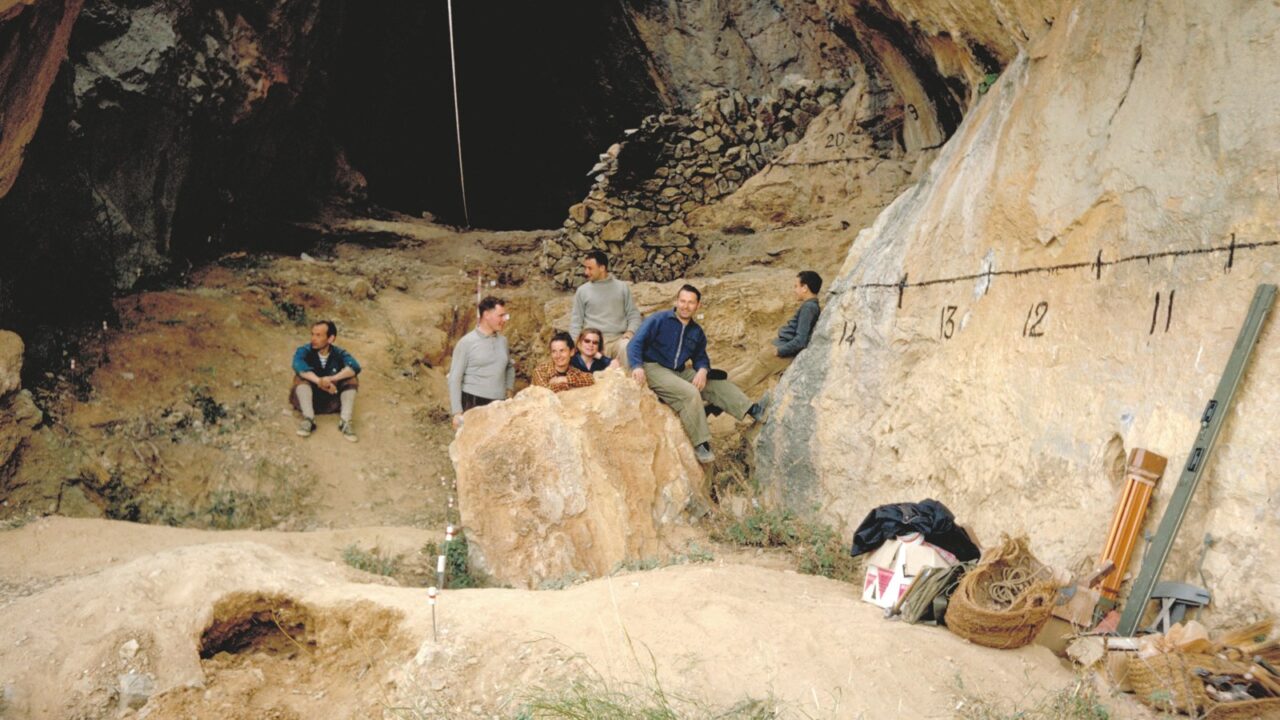
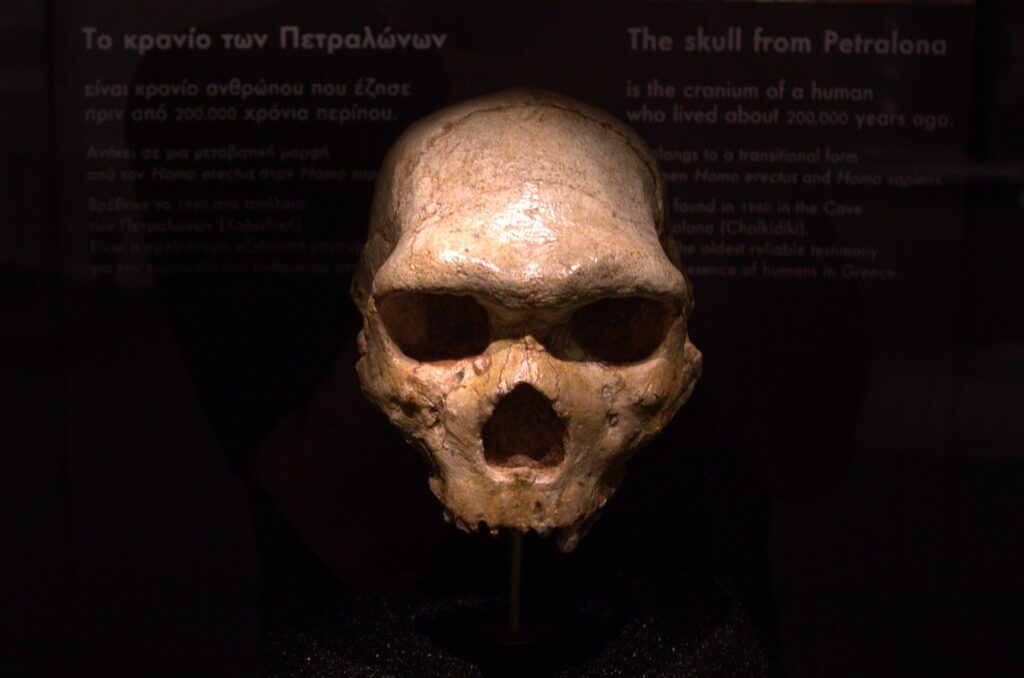
En Europe : la mandibule de Mauer, le crâne de Petralona en Grèce, les restes de l’Arago à Tautavel (dont la face de l’« homme de Tautavel », Arago XXI, vieille d’environ 450 000 ans) et le tibia de Boxgrove, en Angleterre.
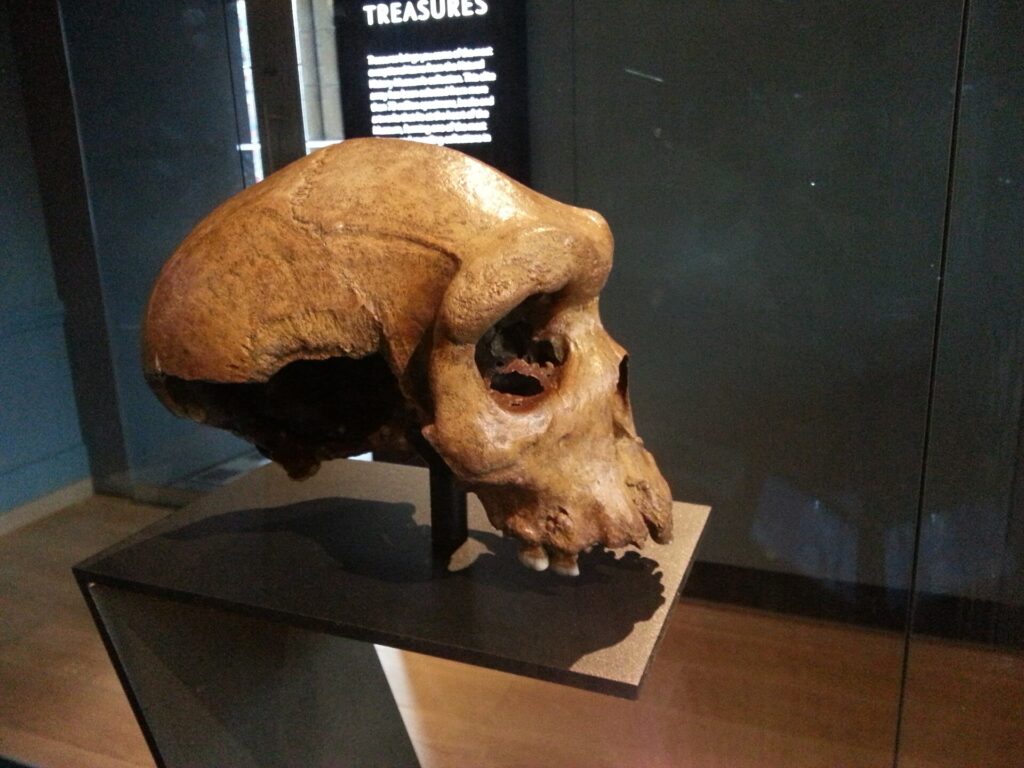
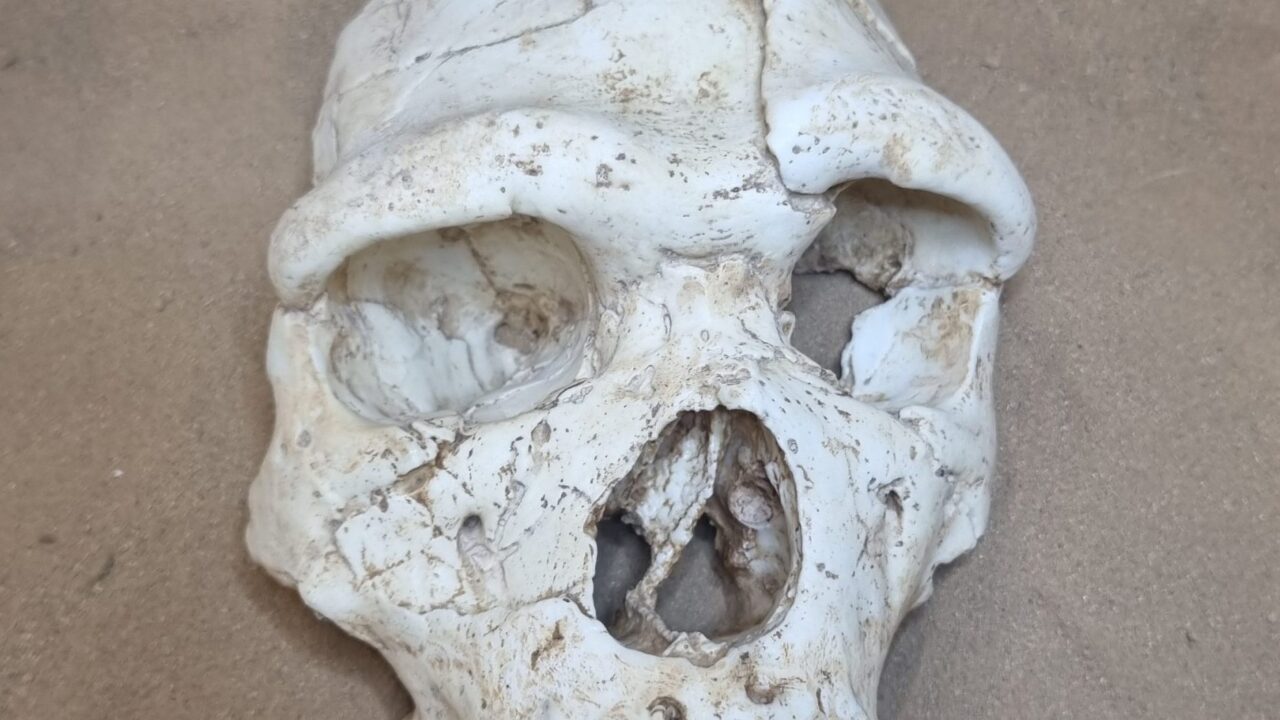
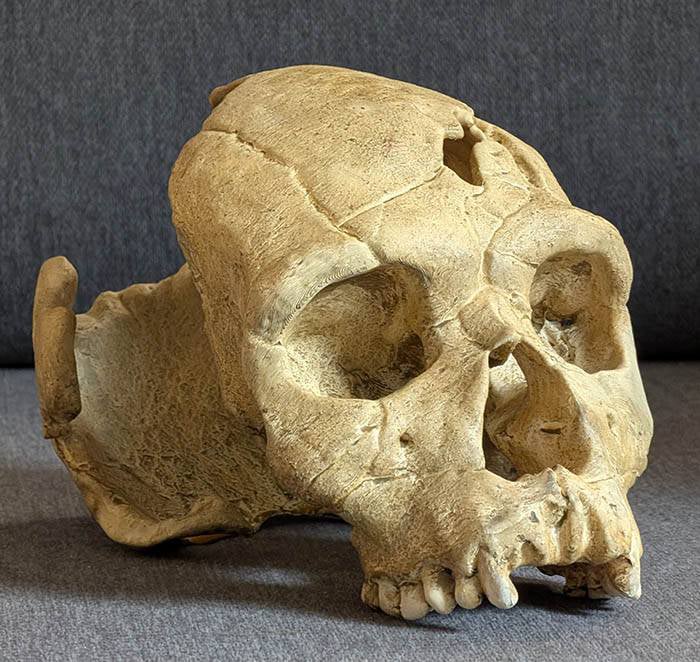
En Afrique : le crâne de Bodo, en Éthiopie, qui porte des stries de découpe sur la face, et celui de Kabwe, en Zambie, longtemps appelé « homme de Broken Hill » et redaté en 2020 à 299 000 ans (à 25 000 ans près). Le crâne de Saldanha, en Afrique du Sud, est souvent ajouté à cet ensemble.
Le crâne de Kabwe a été trouvé en 1921 par un mineur, Tom Zwiglaar, dans une mine de plomb et de zinc. Il porte de nombreuses caries et des abcès dentaires, parmi les plus anciens connus. Il est conservé au Muséum d’histoire naturelle de Londres, et la Zambie en demande la restitution.
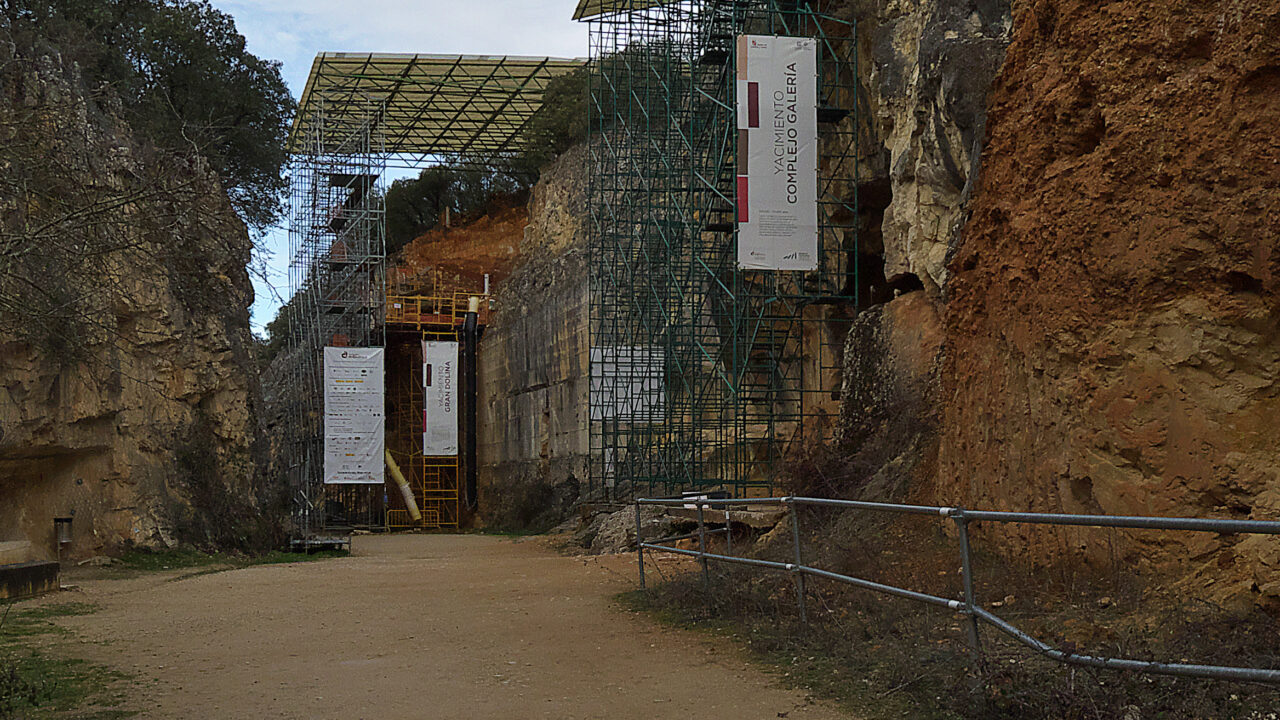
Le gisement le plus riche, la Sima de los Huesos à Atapuerca, avec les restes de vingt-huit individus, a cessé d’être rattaché à l’espèce, pour une raison décisive.
Anatomie et morphologie
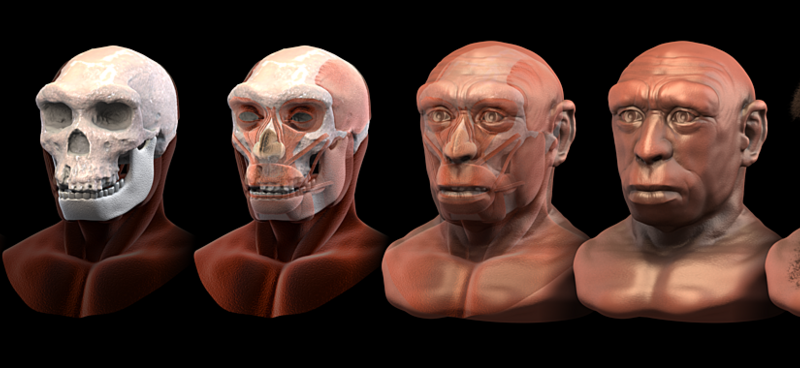
La capacité crânienne s’étage de 1 100 à 1 400 cm³, soit la fourchette basse des humains actuels. Le crâne reste bas et allongé, avec un fort bourrelet sus-orbitaire continu et un front fuyant. La face est large et haute, les orbites grandes.
Le corps est puissant : selon les premières estimations, le tibia de Boxgrove appartenait à un individu d’environ 1,80 m pour plus de 80 kg. L’os est épais, les insertions musculaires marquées. Un tibia de Kabwe indique lui aussi un individu de plus de 1,80 m ; mais la taille moyenne de ces populations se situait sans doute plutôt autour de 1,65 à 1,70 m.
La mandibule de Mauer, enfin, associe une mâchoire très robuste, sans menton, à des dents petites. C’est cette combinaison qui a justifié la création de l’espèce.
Les épieux de Schöningen
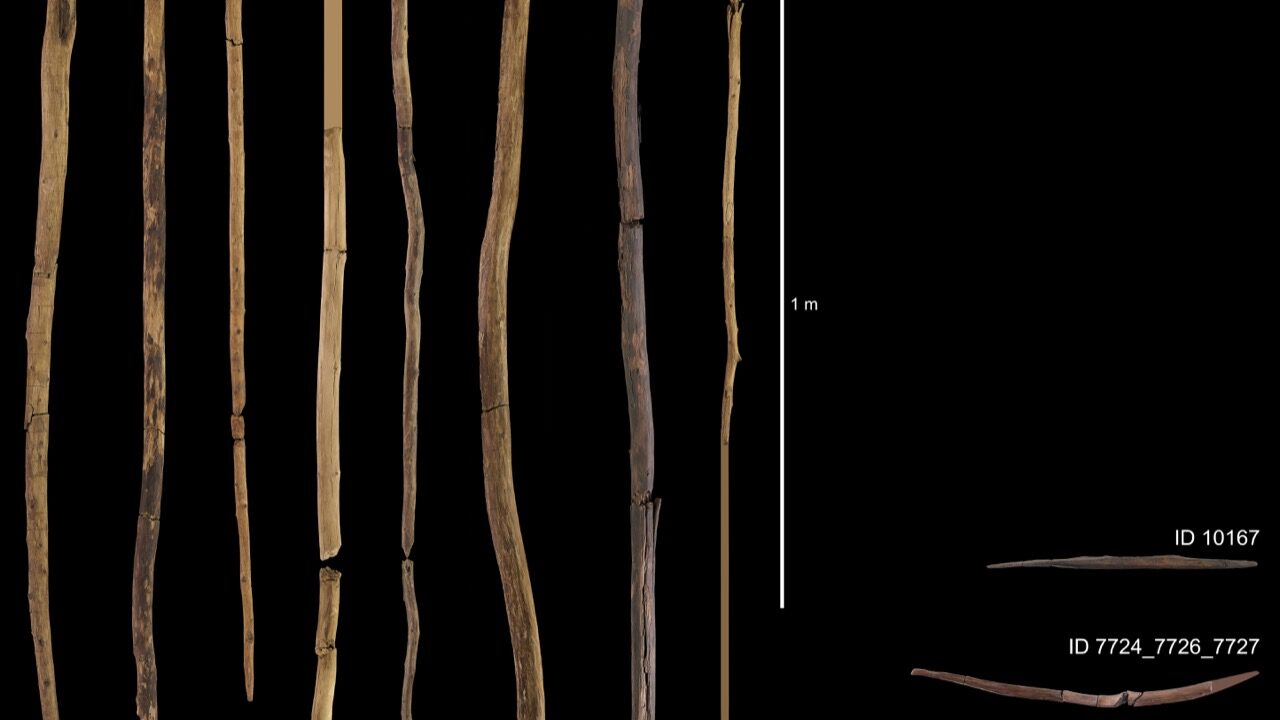
Sur le site de Schöningen, en Basse-Saxe, une mine de lignite a livré entre 1994 et 1999, dans d’anciennes rives de lac gorgées d’eau, ce qui ne se conserve presque jamais : dix épieux en bois (neuf en épicéa, un en pin), longs de 1,84 à 2,53 m, ainsi que deux bâtons à double pointe. Ils étaient associés aux restes de nombreux chevaux portant des traces de découpe.
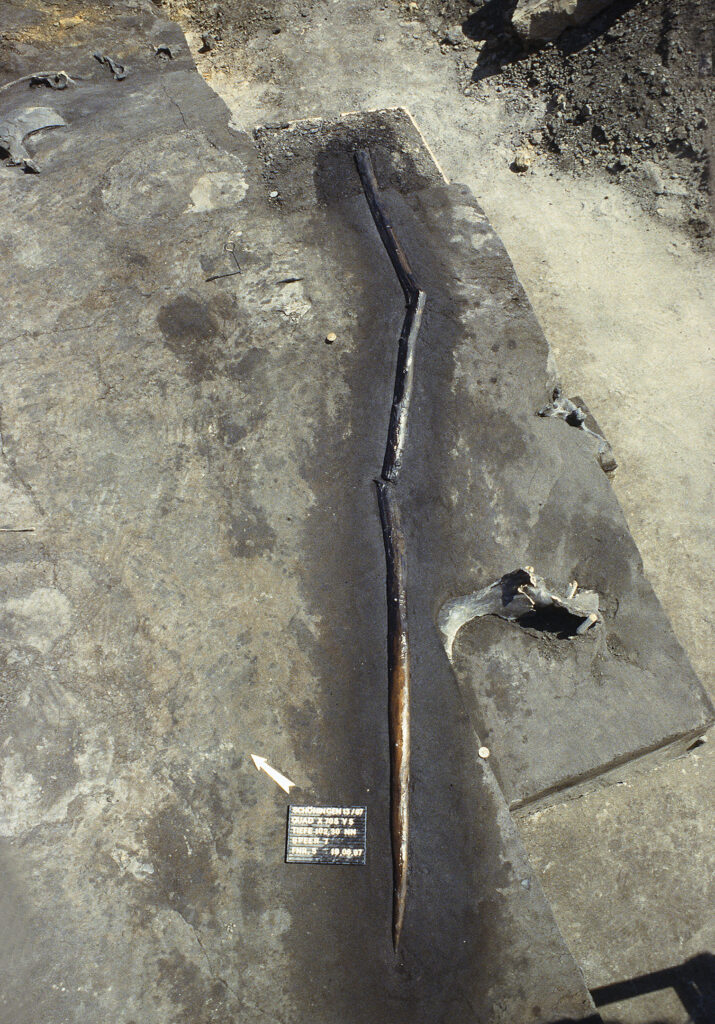
Ces armes, découvertes par l’archéologue Hartmut Thieme, sont travaillées avec soin : chacune a été taillée dans le tronc d’un jeune arbre, et leur diamètre maximal, donc sans doute leur centre de gravité, se trouve au tiers avant, comme sur un javelot de compétition.
La conséquence est lourde. Il ne s’agit pas de charognards opportunistes mais de chasseurs organisés, capables d’abattre de grands herbivores en groupe, avec des armes fabriquées à l’avance et transportées. Et cela suppose tout un pan de technique du bois dont il ne reste, ailleurs, absolument rien.
Reste à savoir qui les a faites. Aucun os humain n’a été trouvé à Schöningen. Les épieux ont été datés d’environ 400 000 ans, puis de 337 000 à 300 000 ans par thermoluminescence. En 2025, une étude publiée dans Science Advances par Jarod Hutson et ses collègues les a rajeunis à environ 200 000 ans, ce qui les attribuerait plutôt à des Néandertaliens anciens. Ce nouvel âge est lui-même discuté.
Mode de vie et environnement
L’outillage est acheuléen en Europe occidentale et en Afrique : bifaces façonnés, parfois d’une régularité remarquable. Vers 500 000 ans, des pointes de pierre emmanchées apparaissent en Afrique du Sud, à Kathu Pan, et à Boxgrove, une omoplate de cheval porte une perforation compatible avec un coup d’épieu.
Le feu devient courant à partir de 400 000 ans, avec des foyers structurés à Menez-Dregan, en Bretagne, et à Beeches Pit, en Angleterre ; ceux de Terra Amata, à Nice, restent discutés. La pointe d’épieu en if de Clacton, en Angleterre, vieille d’environ 400 000 ans, montre que le travail du bois était déjà ancien.
Les populations traversent des cycles glaciaires et interglaciaires successifs, avançant et reculant avec les climats. L’Europe est probablement abandonnée puis recolonisée à plusieurs reprises.
La Sima de los Huesos change la donne
Le puits de la Sima de los Huesos, à Atapuerca, contient vingt-huit individus tombés ou déposés il y a 430 000 ans. On les rattachait naturellement à heidelbergensis.
Un premier ADN mitochondrial, publié fin 2013, a d’abord surpris : il était plus proche de celui des Dénisoviens que de celui des Néandertaliens. L’extraction d’ADN nucléaire, publiée en 2016, a tranché : ces individus appartiennent déjà à la lignée néandertalienne, séparée de la nôtre depuis plusieurs centaines de milliers d’années. L’étude de leurs crânes, publiée en 2014, montrait déjà des traits néandertaliens sur la face et les dents.
Cette découverte fait éclater le concept. Si des populations européennes de 430 000 ans sont déjà des pré-Néandertaliens, alors heidelbergensis ne peut plus désigner l’ancêtre commun de tout le monde : il rassemble des lignées déjà divergentes sous une ressemblance de façade.
Comment on le date
Les méthodes varient : séries de l’uranium sur les planchers stalagmitiques, résonance de spin électronique sur l’émail dentaire, luminescence sur les sédiments, paléomagnétisme et biochronologie. Aucune ne couvre seule tout l’intervalle, et les âges sont souvent obtenus par recoupement.
Quelques exemples. À Mauer, l’âge de 609 000 ans combine la résonance de spin électronique et les séries de l’uranium sur des dents d’animaux à la luminescence des sables. À Kabwe, où le site a été détruit par la mine, l’âge de 2020 a été obtenu directement sur le crâne et sur des os associés.
Petralona illustre la difficulté. Découvert en 1960 par un villageois, ce crâne a reçu des âges compris entre 160 000 et 700 000 ans. En 2025, Christophe Falguères et ses collègues ont daté par les séries de l’uranium la calcite qui le recouvrait : au moins 286 000 ans (à 9 000 ans près), ce qui place le crâne autour de 300 000 ans. Selon eux, l’homme de Petralona appartenait à une population plus archaïque que les Néandertaliens, contemporaine de leurs premiers représentants.
Débats et incertitudes
Le nom lui-même est en sursis. Certains proposent de le réserver aux seuls fossiles européens ; d’autres de créer Homo bodoensis pour les africains, proposition faite fin 2021 par Mirjana Roksandic et ses collègues, et fraîchement accueillie ; d’autres encore d’abandonner le terme. Le nom plus ancien d’Homo rhodesiensis, créé pour Kabwe dès 1921, reste aussi disponible pour les fossiles africains.
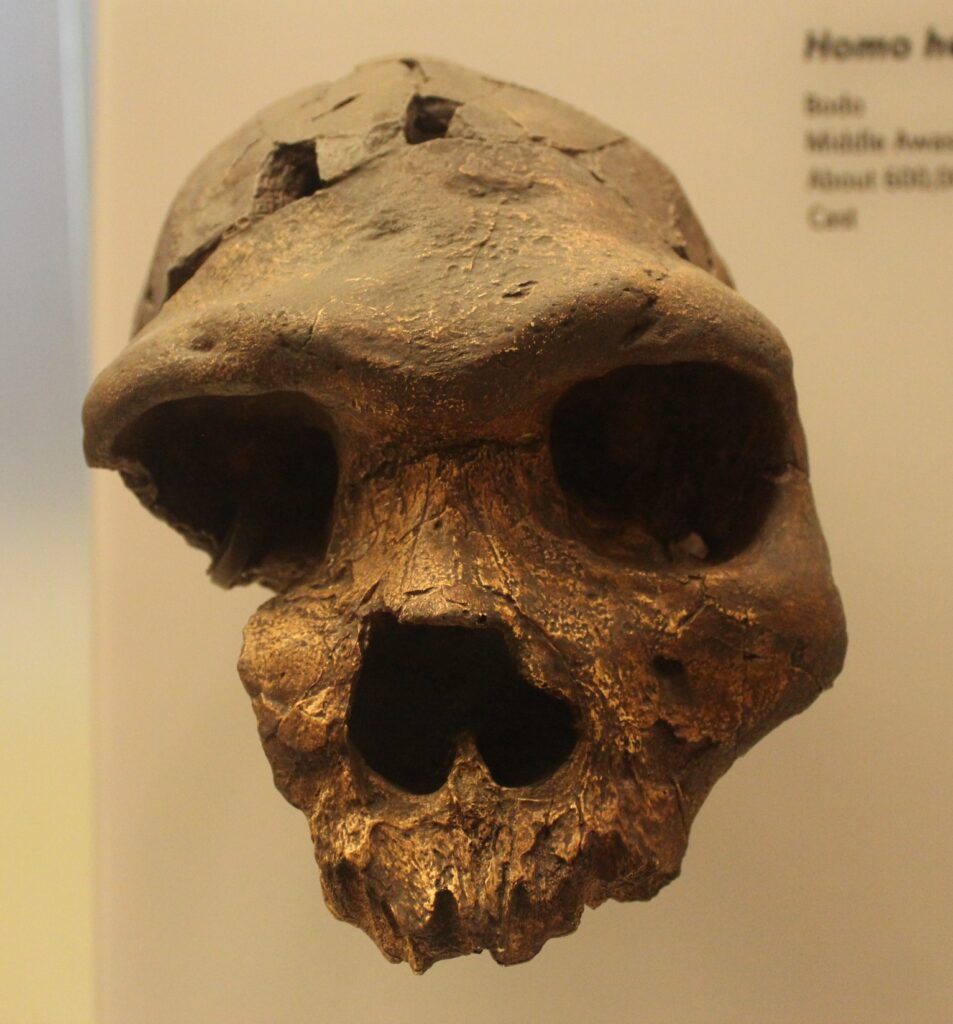
La difficulté est réelle et elle n’est pas qu’une querelle de mots : elle traduit le fait que le Pléistocène moyen est une période de divergence, où plusieurs lignées se séparent lentement sans encore se distinguer nettement par la forme des os.
L’Asie complique encore le tableau. Les crânes chinois de Dali ou de Jinniushan ont parfois été rangés dans heidelbergensis. En 2025, des protéines et de l’ADN mitochondrial extraits du crâne de Harbin, vieux d’au moins 146 000 ans, l’ont rattaché aux Dénisoviens : une partie au moins des fossiles asiatiques de cette époque appartient donc à une autre lignée encore.
Ce qu’il nous apprend
Heidelbergensis est l’exemple type du nom de commodité. Il a servi, pendant un demi-siècle, à désigner l’intervalle entre deux espèces bien définies. Dès que des données indépendantes de la forme des os, ici l’ADN de la Sima, sont arrivées, la case s’est effondrée.
Cela ne veut pas dire que ces populations n’ont pas existé, ni qu’elles n’ont pas d’importance. Elles ont franchi une étape majeure : chasse organisée au grand gibier, feu domestique, armes de bois et premiers emmanchements, occupation durable de l’Europe tempérée. Ce sont ces populations, sous quelque nom qu’on les range, qui ont produit Néandertal d’un côté et nous de l’autre.
La leçon est de méthode : un nom d’espèce n’est pas un fait de nature, c’est une hypothèse de parenté. Quand l’hypothèse est réfutée, le nom tombe.
Idées reçues à corriger
« L’homme de Tautavel est un Homo heidelbergensis. » C’est l’usage le plus courant, mais pas celui de son découvreur : Henry de Lumley le range dans une sous-espèce d’Homo erectus, Homo erectus tautavelensis. Les deux classements coexistent.
« Heidelbergensis est notre ancêtre direct. » Peut-être pour certaines populations africaines, sûrement pas pour toutes. Les Européens de la Sima étaient déjà sur la branche néandertalienne.
« C’étaient des brutes. » Les épieux équilibrés, les bifaces symétriques et la maîtrise du feu disent le contraire : une technique transmise, planifiée, exigeante.
Où voir les fossiles
La mandibule de Mauer est conservée à l’université de Heidelberg ; une réplique est présentée à Mauer même, près de la sablière. Le crâne de Kabwe est au Muséum d’histoire naturelle de Londres. À Tautavel, le musée de Préhistoire expose la face d’Arago XXI et retrace les fouilles de la Caune de l’Arago. Un moulage précis du crâne de Petralona est visible au musée archéologique de Thessalonique, et le musée de Schöningen présente les épieux dans leur contexte.
Chronologie de la recherche
- 21 octobre 1907 : découverte de la mandibule de Mauer ; description par Otto Schoetensack en 1908.
- 1921 : découverte du crâne de Kabwe (Broken Hill), nommé Homo rhodesiensis.
- 1960 : découverte du crâne de Petralona, en Grèce.
- 1971 : découverte de la face Arago XXI à Tautavel.
- 1976 : découverte du crâne de Bodo, en Éthiopie.
- 1993-1994 : tibia de Boxgrove, en Angleterre.
- 1994-1999 : fouille des épieux de Schöningen ; publication dans Nature en 1997.
- 2010 : datation de Mauer à 609 000 ans.
- 2016 : ADN nucléaire de la Sima de los Huesos.
- 2020 : datation de Kabwe à 299 000 ans.
- 2021 : proposition d’Homo bodoensis.
- 2025 : nouvel âge de Petralona et rajeunissement contesté des épieux de Schöningen.
Ce qu’il reste à trouver
De l’ADN ou des protéines sur les fossiles africains, pour savoir lesquels appartiennent à notre lignée. Et d’autres sites à conservation exceptionnelle comme Schöningen : c’est là, dans le bois et la fibre, que se joue tout ce que l’on ignore de leur technique.
Il manque aussi des fossiles humains associés à ces sites : un seul os trouvé avec les épieux réglerait la question de leurs fabricants.
Pour aller plus loin
- Schoetensack O., 1908. Der Unterkiefer des Homo heidelbergensis aus den Sanden von Mauer bei Heidelberg. Leipzig, Engelmann.
- Thieme H., 1997. Lower Palaeolithic hunting spears from Germany. Nature, 385.
- Wagner G. A. et al., 2010. Radiometric dating of the type-site for Homo heidelbergensis at Mauer, Germany. PNAS, 107.
- Roebroeks W., Villa P., 2011. On the earliest evidence for habitual use of fire in Europe. PNAS, 108.
- Arsuaga J. L. et al., 2014. Neandertal roots: cranial and chronological evidence from Sima de los Huesos. Science, 344.
- Meyer M. et al., 2016. Nuclear DNA sequences from the Middle Pleistocene Sima de los Huesos hominins. Nature, 531.
- Grün R. et al., 2020. Dating the skull from Broken Hill, Zambia, and its position in human evolution. Nature, 580.
- Roksandic M. et al., 2022. Resolving the « muddle in the middle »: the case for Homo bodoensis sp. nov. Evolutionary Anthropology, 31.
- Hutson J. M. et al., 2025. Article de Science Advances proposant un âge d’environ 200 000 ans pour les épieux de Schöningen.
- Falguères C. et al., 2025. New U-series dates on the Petralona cranium, a key fossil in European human evolution. Journal of Human Evolution.
- Fu Q. et al., 2025. Analyses protéomique (Science) et d’ADN mitochondrial (Cell) du crâne de Harbin.
- Smithsonian Institution, Human Origins Program : fiche Homo heidelbergensis.
Sites & fossiles majeurs
Mauer (Allemagne), Sima de los Huesos (Espagne)