Portrait général
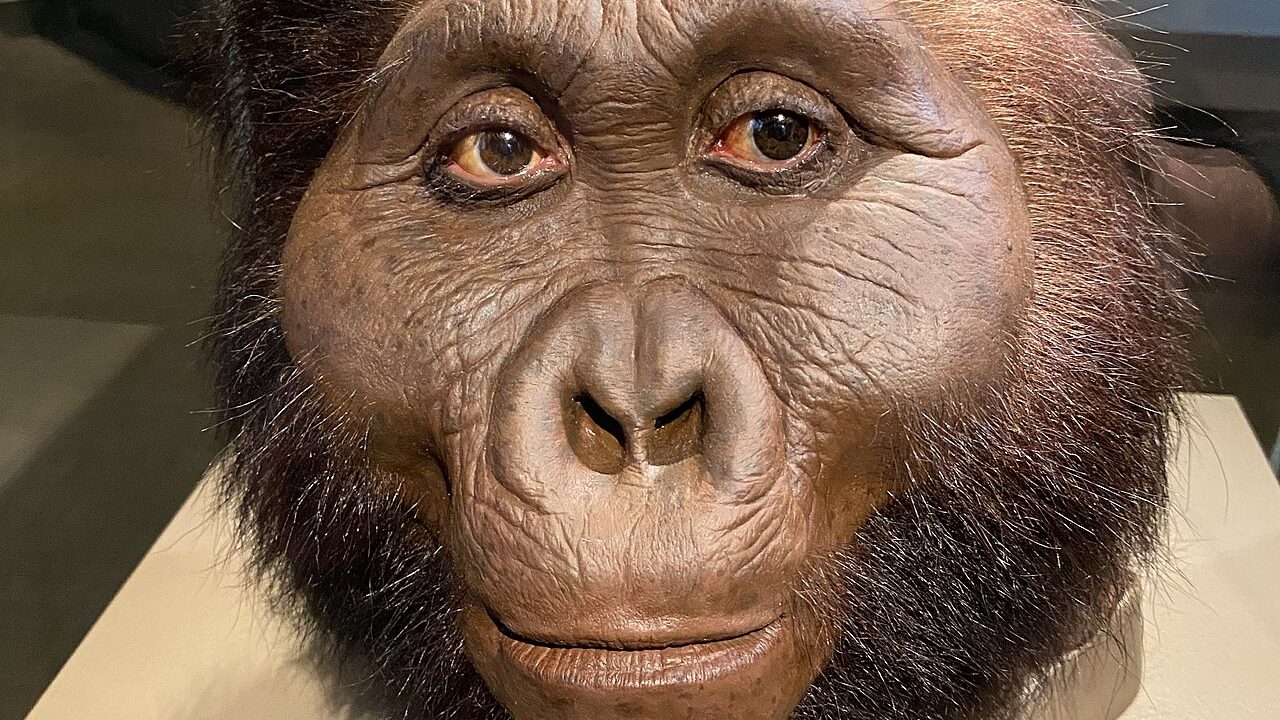
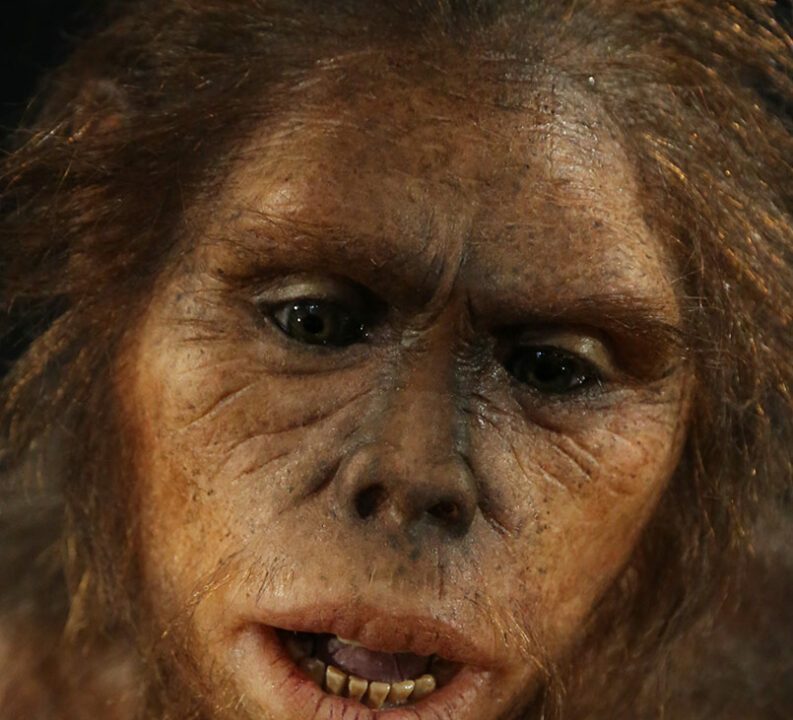
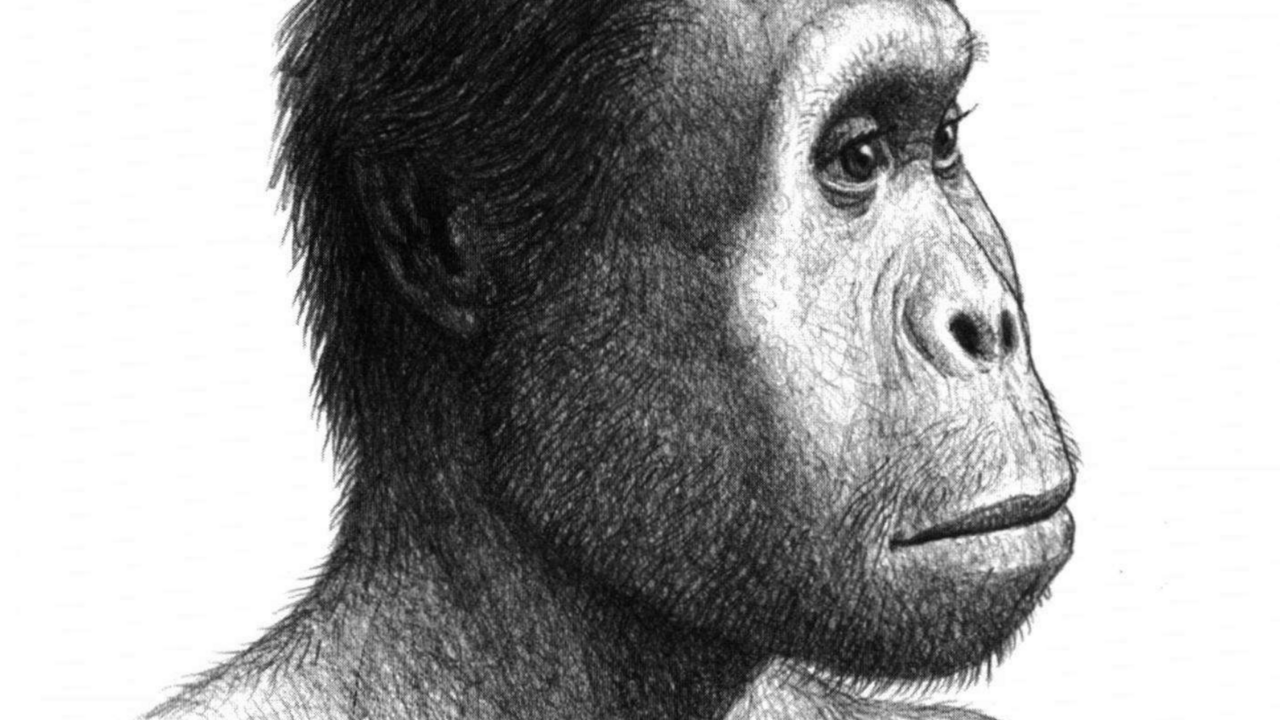
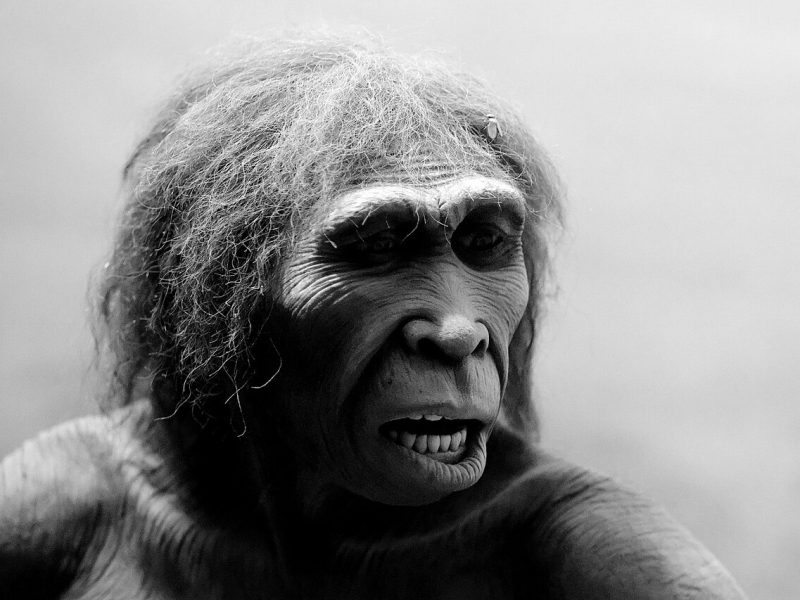
Homo ergaster, « l’homme artisan », a vécu en Afrique de l’Est et australe entre environ 1,9 et 1,4 million d’années. C’est le premier hominine dont le corps ressemble vraiment au nôtre : grand, élancé, aux jambes longues, fait pour marcher et courir loin.
C’est avec lui que la silhouette humaine se stabilise. Tout ce qui suivra jouera sur le crâne et le cerveau ; l’architecture du corps, elle, est en place.
Son nom même est un sujet de discussion. Beaucoup de chercheurs le rangent dans Homo erectus, dont il serait la forme africaine ancienne ; d’autres le considèrent comme une espèce à part entière. Cette fiche emploie ergaster pour les fossiles africains de cette période.
Découverte
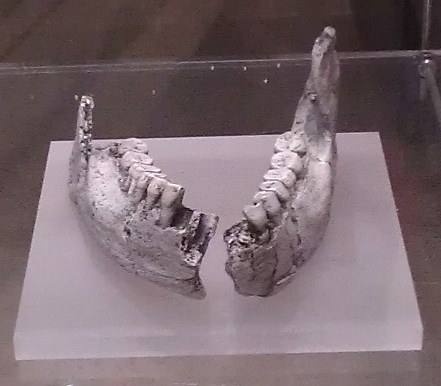
L’espèce est créée en 1975 par Colin Groves et Vratislav Mazák à partir d’une mandibule d’Ileret, sur la rive est du lac Turkana, au Kenya : KNM-ER 992. Le nom vient du grec ergastêr, « ouvrier », en référence aux outils de pierre trouvés dans les mêmes niveaux.
L’espèce reste confidentielle jusqu’à la découverte qui va la rendre célèbre. En août 1984, à Nariokotome, sur la rive ouest du lac, Kamoya Kimeu, chef de l’équipe de prospection kényane de Richard Leakey et d’Alan Walker, repère un petit fragment de crâne dans un talus. Plusieurs saisons de fouille livrent le squelette presque complet d’un adolescent.
- 1972 : Richard Leakey publie la mandibule KNM-ER 992, sans l’attribuer à une espèce.
- 1973 : découverte du squelette partiel KNM-ER 1808 à Koobi Fora.
- 1975 : Groves et Mazák nomment Homo ergaster ; la même année, Bernard Ngeneo trouve le crâne KNM-ER 3733.
- 1984 : Kamoya Kimeu repère le Garçon de Turkana (KNM-WT 15000) ; publication dans Nature en 1985.
- 2007 : description du petit crâne KNM-ER 42700 d’Ileret.
- 2009 : publication des empreintes de pas d’Ileret, vieilles de 1,5 million d’années.
- 2011 : les bifaces de Kokiselei repoussent l’Acheuléen à 1,76 million d’années.
Le bassin du Turkana
Presque tout ce que l’on sait d’ergaster vient des rives du lac Turkana, au nord du Kenya. Le lac occupe une dépression du rift est-africain, une zone où la croûte terrestre s’étire et s’affaisse lentement. Cette subsidence a piégé, pendant des millions d’années, les sédiments apportés par l’Omo et les rivières locales.
Le résultat est une pile de couches de plusieurs centaines de mètres, entaillée par l’érosion, où les volcans voisins ont intercalé des cendres datables. Rive est (formation de Koobi Fora) et rive ouest (formation de Nachukui) se répondent couche à couche.
Vers 1,9 à 1,5 million d’années, le paysage change. Le grand lac laisse souvent place à une plaine traversée par un fleuve, avec des marécages, des forêts-galeries le long des cours d’eau et, plus loin, des étendues herbeuses. Les graminées dites C4, typiques des savanes chaudes, progressent. C’est dans ce monde plus ouvert, plus sec et plus saisonnier qu’ergaster apparaît.
Les fossiles de référence
KNM-ER 992, l’holotype, est une mandibule robuste aux dents bien conservées. Elle fixe le nom, mais elle dit peu de choses sur le reste du corps.
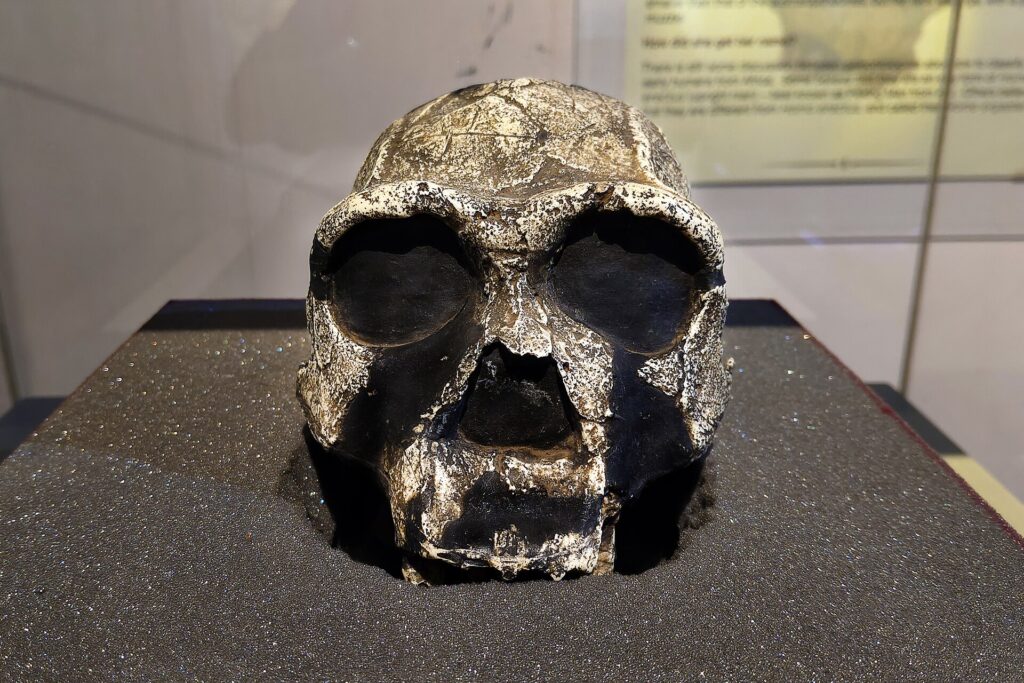
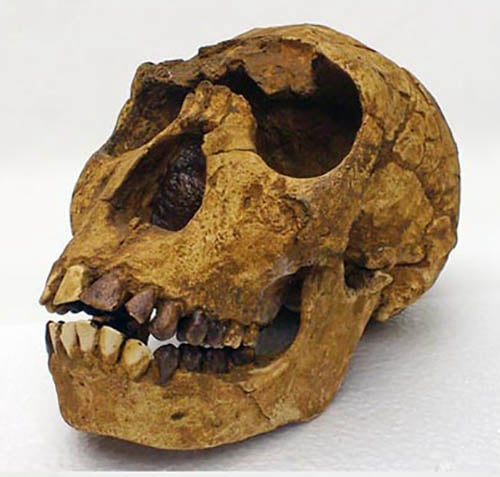
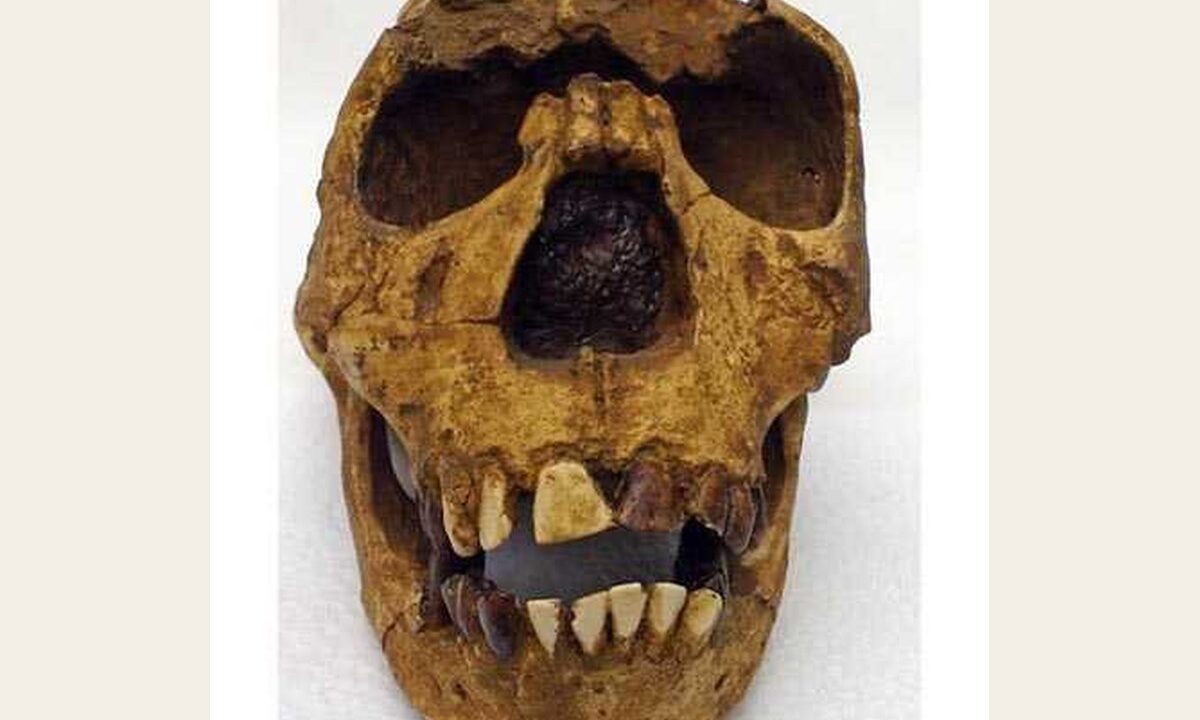
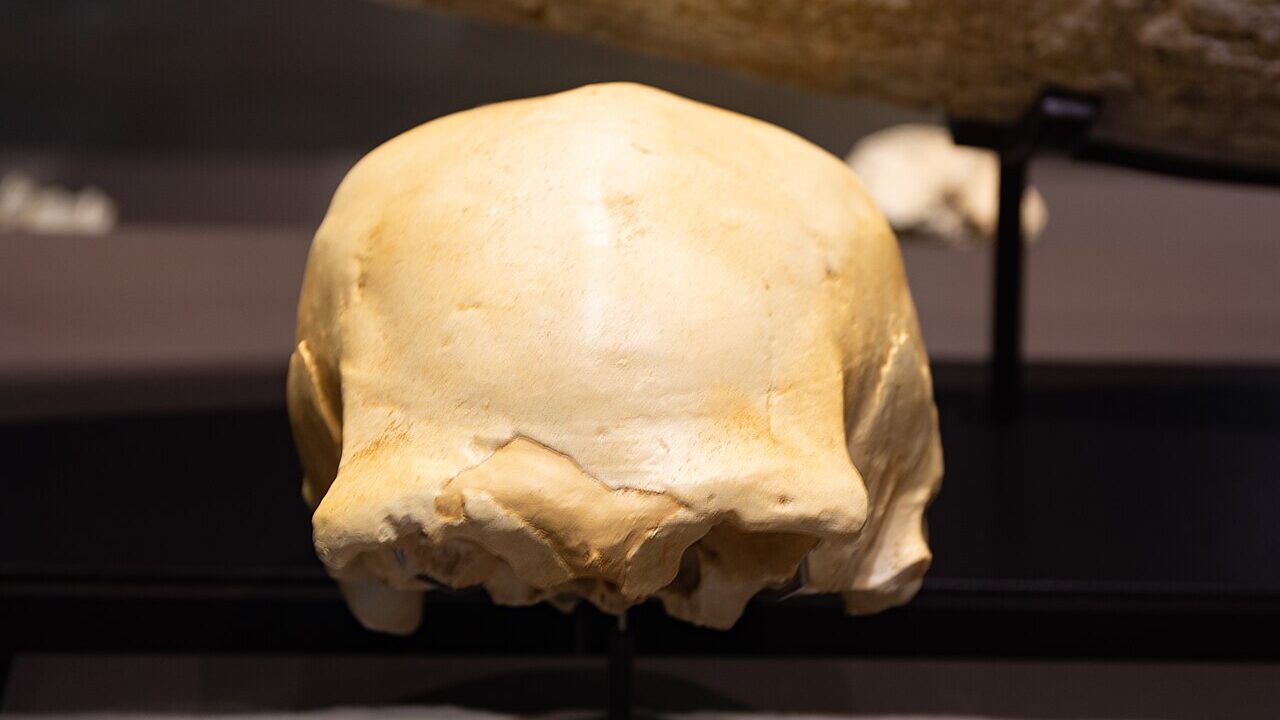
KNM-ER 3733, trouvé en 1975 par Bernard Ngeneo à Koobi Fora, est un crâne presque complet d’adulte, daté d’environ 1,6 million d’années. Sa capacité crânienne avoisine 850 cm³. Plus gracile, il est souvent considéré comme féminin.
KNM-ER 3883, découvert en 1976 sur la même rive, est un crâne plus massif, aux arcades sourcilières épaisses, daté de 1,6 à 1,5 million d’années, pour environ 800 cm³. Il est généralement interprété comme masculin.
KNM-ER 1808 est le squelette partiel d’une femme adulte, vieux d’environ 1,7 million d’années. Ses os des membres sont recouverts d’une couche d’os anormal, sur laquelle on reviendra.
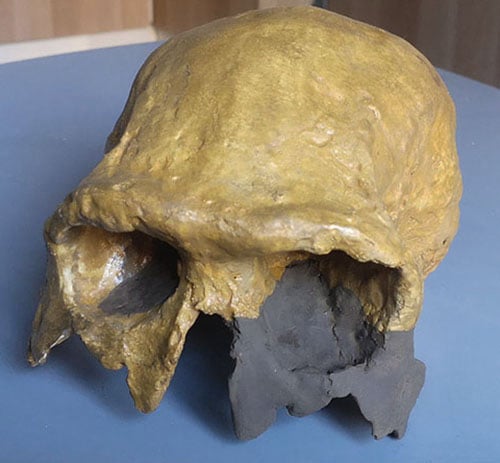
KNM-ER 42700, un crâne sans face trouvé à Ileret et publié en 2007 par Fred Spoor et ses collègues, est daté de 1,55 million d’années. Il n’a qu’environ 690 cm³, ce qui en fait l’un des plus petits de l’espèce. La variation de taille au sein du groupe était donc large.
Le Garçon de Turkana
KNM-WT 15000 est l’un des squelettes d’hominine ancien les plus complets jamais trouvés : crâne, mandibule, vertèbres, côtes, bassin, membres, soit plus d’une centaine d’os. Il s’agit d’un garçon, mort au bord d’un marécage, dont les restes ont été dispersés puis enfouis rapidement.
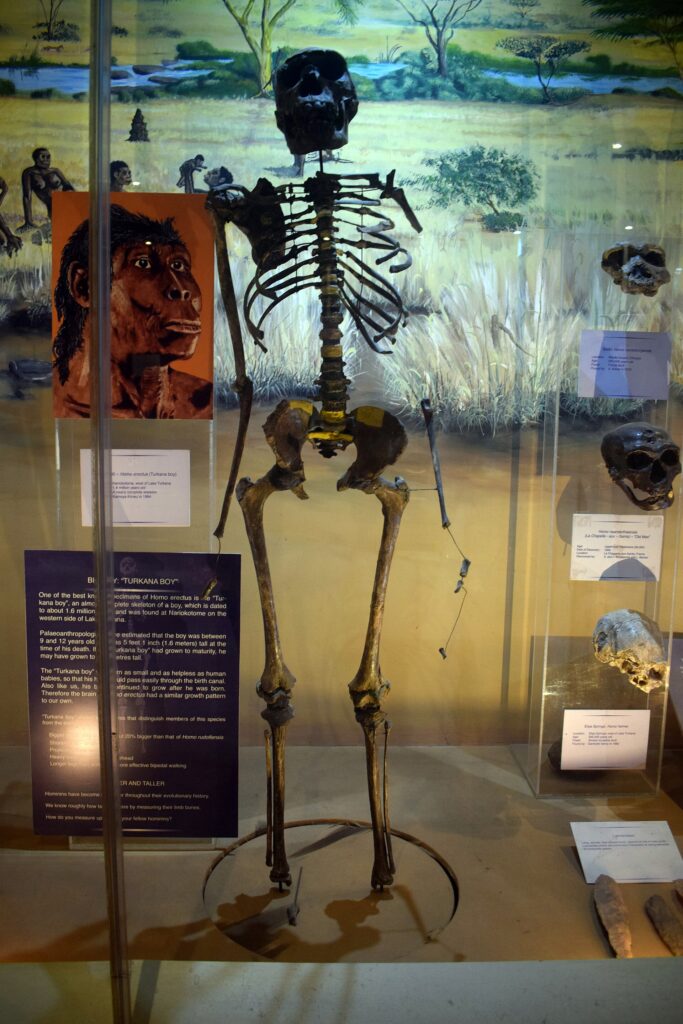
Son âge au décès a beaucoup varié selon les méthodes. Avec les standards humains actuels, Walker et Leakey l’estimaient à 11 ou 12 ans. Mais le comptage des lignes de croissance de l’émail dentaire, une horloge biologique interne, donne plutôt 8 ans environ (Dean et Smith, 2009). Le squelette paraît plus mûr que les dents : c’est un indice d’une croissance différente de la nôtre.
Sa taille au décès est estimée autour de 1,50 à 1,60 m. Sa taille adulte, longtemps annoncée vers 1,85 m, a été revue : en supposant une croissance rapide, sans grande poussée pubertaire, Graves et ses collègues obtiennent environ 1,63 m (2010). En s’appuyant sur la croissance des grands singes, Ruff et Burgess remontent l’estimation vers 1,76 à 1,80 m (2015). La question reste donc ouverte, et elle dépend entièrement du modèle de croissance choisi.
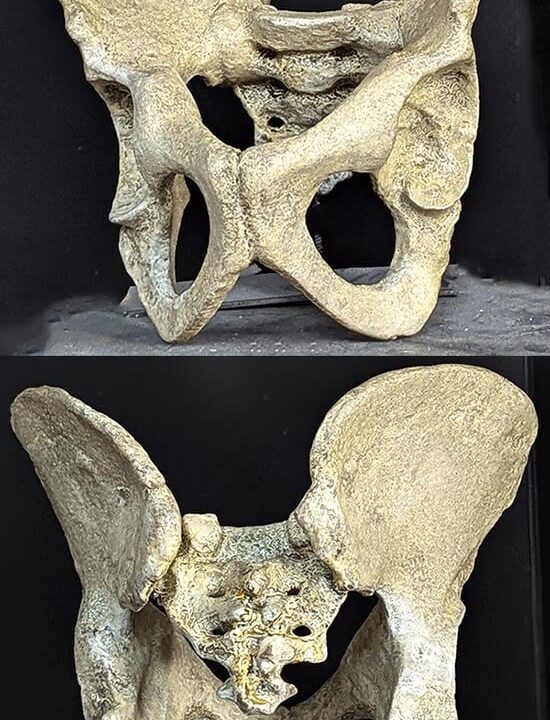
Ce squelette a permis d’établir, pour la première fois, des proportions corporelles complètes : jambes longues, bras courts, thorax en tonneau, bassin étroit. Un corps de marcheur des milieux ouverts. Sa capacité crânienne, d’environ 880 cm³, aurait atteint un peu plus de 900 cm³ à l’âge adulte.
L’original est conservé par les Musées nationaux du Kenya, à Nairobi, qui détiennent aussi la plupart des autres fossiles cités ici. Des moulages du squelette sont exposés dans de nombreux musées d’histoire naturelle à travers le monde.
Anatomie et morphologie
La capacité crânienne va d’environ 600 à 900 cm³, soit nettement plus que chez les australopithèques et que chez Homo habilis, mais encore loin des quelque 1 350 cm³ de l’humain actuel.
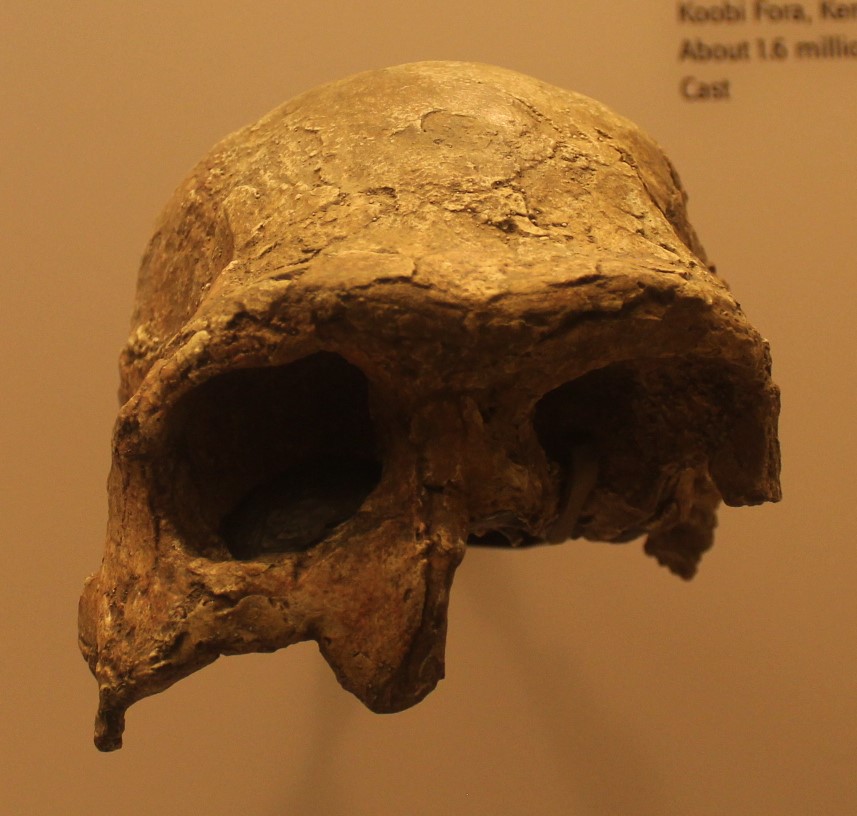
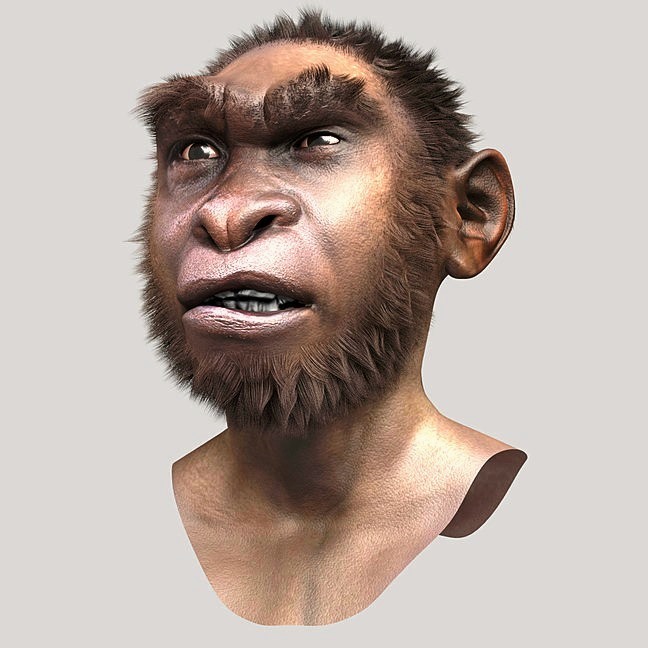
Le crâne est long et bas. Il porte un bourrelet sus-orbitaire net, un front fuyant, et une face nettement moins projetée que chez les australopithèques.
Les dents sont réduites, ce qui indique une alimentation moins exigeante en mastication : viande, moelle, et peut-être aliments préparés.
La silhouette élancée, avec des membres longs et un tronc étroit, correspond à ce que l’on observe aujourd’hui chez les populations de milieux chauds et secs : une morphologie qui favorise la dissipation de la chaleur. Le dimorphisme sexuel de taille paraît plus faible que chez les australopithèques, même si l’échantillon reste trop réduit pour l’affirmer sans réserve.
Un corps de marcheur et de coureur
Avec ergaster, le corps cesse d’être un compromis entre la marche et la grimpe. Les bras raccourcissent, l’épaule perd son orientation de grimpeur, les articulations de la hanche, du genou et des vertèbres lombaires s’élargissent pour encaisser des chocs répétés.
En 2004, Dennis Bramble et Daniel Lieberman ont proposé dans Nature que ces traits trahissent une aptitude à la course d’endurance : longs tendons capables de stocker l’énergie, fessiers puissants pour stabiliser le tronc, canaux de l’oreille interne adaptés à l’équilibre en mouvement. L’idée reste discutée : la seule marche au long cours pourrait expliquer plusieurs de ces traits.
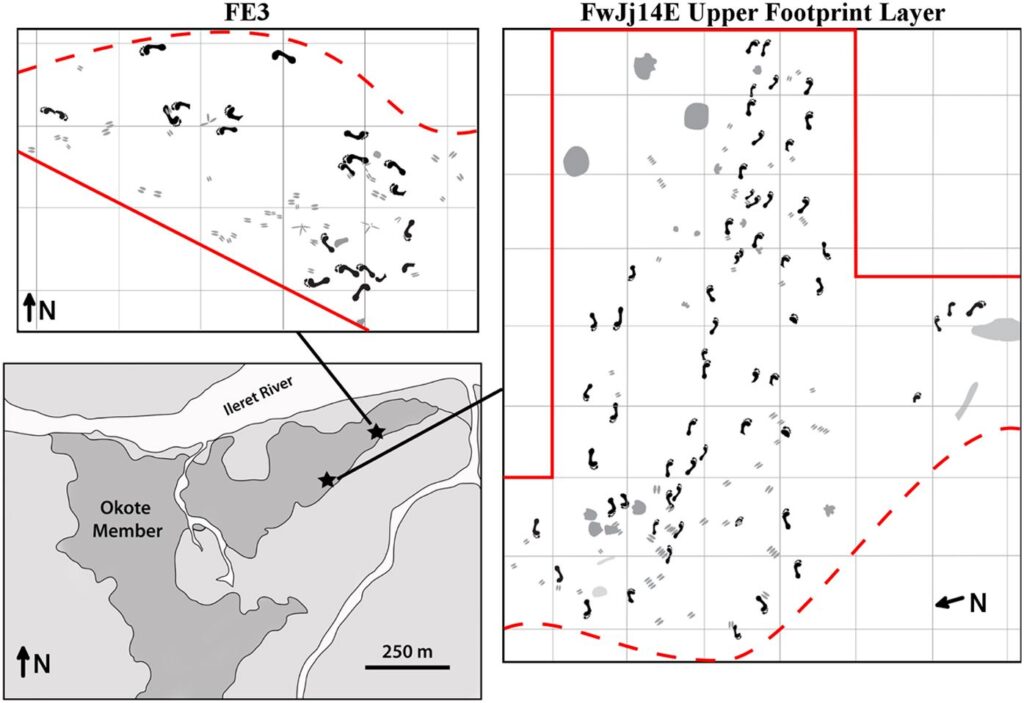
Les empreintes de pas d’Ileret, publiées en 2009 par l’équipe de Matthew Bennett, apportent une preuve directe. Vieilles d’environ 1,5 million d’années, elles montrent une voûte plantaire, un talon arrondi et un gros orteil aligné sur les autres : un pied moderne. Des fouilles ultérieures ont porté le corpus à 97 empreintes laissées par une vingtaine d’individus au moins. Kevin Hatala et ses collègues y ont relevé, en 2016, la présence de plusieurs mâles adultes ensemble, peut-être un groupe de fourrage.
Ce corps marcheur a aussi un coût thermique. Beaucoup de chercheurs supposent qu’ergaster avait déjà perdu l’essentiel de sa pilosité et transpirait abondamment, comme nous. Hypothèse plausible, mais la peau ne se fossilise pas.
Grandir vite : ce que disent les dents
L’émail dentaire se dépose en couches quotidiennes et hebdomadaires, comme les cernes d’un arbre. En les comptant, on reconstitue le calendrier de formation des dents d’un individu mort il y a plus d’un million d’années.
En 2001, Christopher Dean et ses collègues ont montré que les dents des premiers Homo africains se formaient plus vite que les nôtres, à un rythme plus proche de celui des grands singes. Le Garçon de Turkana en est l’exemple le plus parlant : ses dents disent 8 ans, alors qu’un enfant actuel de même taille et de même maturité squelettique en aurait plutôt 12 ou 13.
La conséquence est importante. La longue enfance humaine, avec sa croissance lente et sa poussée pubertaire tardive, ne semble pas encore en place. Ergaster grandissait plus vite et atteignait l’âge adulte plus tôt. Ce que l’on a parfois décrit comme un « adolescent humain » était en réalité un enfant d’une autre espèce, au calendrier différent.
La technique acheuléenne
Ergaster est associé à l’apparition du biface. Les plus anciens connus proviennent de Kokiselei, sur la rive ouest du Turkana, datés de 1,76 million d’années par Christopher Lepre et ses collègues (2011) ; ceux de Konso, en Éthiopie, atteignent un âge comparable, vers 1,75 million d’années. C’est un saut technique réel : là où l’Oldowayen produisait un tranchant utile, l’Acheuléen impose une forme voulue à l’avance, symétrique sur deux plans.
Fabriquer un biface suppose de tenir un projet mental à travers des dizaines de gestes successifs, et d’anticiper le résultat de chaque enlèvement. Cette capacité de planification est l’un des rares indices cognitifs solides dont on dispose pour cette période.
À Kokiselei, les bifaces côtoient des outils oldowayens dans les mêmes niveaux. Les deux traditions ne se sont donc pas succédé proprement : elles ont coexisté, peut-être chez les mêmes artisans, selon les tâches.
Attribuer ces outils à ergaster reste une inférence. Aucun biface n’a été trouvé dans la main d’un fossile, et d’autres hominines vivaient alors dans le bassin. Mais son apparition coïncide avec celle de l’Acheuléen.
Mode de vie et environnement
Les sites livrent des concentrations d’os découpés et d’outils, dans des paysages ouverts de savane arborée. La consommation régulière de viande, ressource dense en énergie, est cohérente avec la réduction dentaire et l’augmentation du cerveau.
Les isotopes du carbone de l’émail le confirment indirectement. Chez les Homo du Turkana, la part des ressources issues des milieux herbeux (plantes C4 ou animaux qui s’en nourrissent) représente environ 35 % du régime vers 2 millions d’années, et augmente jusque vers 1,5 million d’années (Cerling et collègues, 2013). Ce signal ne distingue pas la viande d’herbivores des plantes de savane.
Le squelette KNM-ER 1808 raconte une histoire singulière. Ses os longs sont recouverts d’une épaisse couche d’os pathologique. En 1982, Alan Walker et ses collègues y ont vu une intoxication à la vitamine A, peut-être due à la consommation de foie de carnivore. D’autres diagnostics ont été proposés depuis, comme une infection, et la question n’est pas tranchée. Elle a survécu un temps avec une maladie invalidante, ce qui suggère peut-être une aide de ses proches.
Ergaster ne vivait pas seul. Dans le même bassin vivaient Paranthropus boisei et, jusque vers 1,44 million d’années, des fossiles attribués à Homo habilis. Des empreintes de Koobi Fora, publiées en 2024 par l’équipe de Kevin Hatala, suggèrent même que Paranthropus et Homo ont foulé la même rive à quelques heures d’intervalle.
La question de la cuisson reste ouverte : elle expliquerait élégamment ces changements, mais les traces de feu domestiqué avant un million d’années sont rares et discutées. Le site FxJj20 de Koobi Fora, vieux d’environ 1,5 million d’années, a livré des os et des sédiments chauffés, regroupés au cœur d’une concentration d’outils (Hlubik et collègues, 2017). L’indice est sérieux, mais un feu naturel n’est pas exclu.
Comment on le date
Les gisements du Turkana sont encadrés par des tufs volcaniques datés à l’argon-argon et identifiés par leur composition chimique. On complète par le paléomagnétisme : les inversions du champ magnétique terrestre, enregistrées dans les sédiments, fournissent des repères datés à l’échelle mondiale. C’est ainsi qu’ont été calés les bifaces de Kokiselei.
Le squelette de Nariokotome a d’abord été annoncé, en 1985, à environ 1,6 million d’années. Les travaux géologiques de Frank Brown et Ian McDougall ont précisé l’âge à environ 1,5 million d’années (1,53 million selon l’estimation la plus citée), avec une marge de quelques dizaines de milliers d’années.
Place dans la lignée
Ergaster est généralement considéré comme l’ancêtre, ou la forme précoce, d’Homo erectus asiatique. Il est souvent placé, plus prudemment, à la racine des lignées plus tardives qui mèneront en Europe et en Afrique à Néandertal et à sapiens. Les étapes intermédiaires, dont Homo antecessor, restent débattues.
Il est aussi le premier candidat sérieux à la sortie d’Afrique : les fossiles de Dmanissi, en Géorgie, datés d’environ 1,8 million d’années, en sont très proches, même s’ils ont un cerveau plus petit et sont parfois classés à part.
Son origine est moins claire. Un crâne d’enfant de Drimolen, en Afrique du Sud (DNH 134), daté d’environ 2 millions d’années et rattaché à Homo erectus au sens large, montre que ce type humain existait déjà dans le sud du continent.
Débats et incertitudes
La validité de l’espèce est le principal point de discorde : une partie de la communauté préfère parler d’Homo erectus africain, réservant ergaster au rang de variante géographique. Le débat porte moins sur les fossiles que sur la manière de nommer un continuum. Des auteurs comme Ian Tattersall défendent la distinction ; d’autres, comme Susan Antón, voient dans les différences une variation interne à une seule espèce.
Un second débat, ancien, portait sur le canal rachidien du Garçon de Turkana. En 1993, Ann MacLarnon l’avait jugé trop étroit au niveau du thorax pour permettre le contrôle respiratoire fin qu’exige la parole. En 2015, Marc Meyer et Martin Haeusler ont montré que la plupart des vertèbres se situent dans la variation humaine, et que seules trois (C7, T2 et T3) sont rétrécies, probablement par une pathologie. L’argument n’est plus considéré comme décisif.
Le squelette lui-même est un patient. On l’a longtemps cru atteint de scoliose ; une étude de Schiess et Haeusler (2013) a écarté ce diagnostic et retenu une hernie discale lombaire, qui a pu gêner ses déplacements. Une infection de la mâchoire, souvent évoquée comme cause de la mort, reste une hypothèse.
Ce qu’il nous apprend
Avec ergaster, le corps humain cesse d’être un compromis. Les australopithèques marchaient et grimpaient ; lui ne grimpe plus. Les jambes s’allongent, le thorax se referme, le pied se voûte : c’est une machine à parcourir de longues distances sous un climat chaud.
Ce corps a des conséquences en chaîne. Un bassin étroit et un cerveau qui grandit imposent à terme des naissances plus précoces, donc des nouveau-nés plus dépendants, donc une durée d’élevage plus longue, donc une organisation sociale différente. Les dents du Garçon de Turkana invitent toutefois à la prudence : chez ergaster, cette longue enfance n’était pas encore pleinement installée. Beaucoup de ce qui fait notre espèce est engagé ici, mais pas encore achevé.
Ce qu’il reste à trouver
Des sites avec traces de feu bien datées entre 1,8 et 1,0 million d’années, qui trancheraient la question de la cuisson, l’une des plus lourdes de conséquences pour comprendre l’évolution du corps humain.
Il manque aussi des mains et des pieds associés à un même squelette, des fossiles plus anciens que 1,9 million d’années pour cerner son origine, et des outils trouvés en association directe avec des restes humains.
Pour aller plus loin
- Groves C. P. et Mazák V. (1975), Časopis pro mineralogii a geologii (création de l’espèce).
- Brown F., Harris J., Leakey R. et Walker A. (1985), Nature (annonce du Garçon de Turkana).
- Walker A. et Leakey R. (dir.) (1993), The Nariokotome Homo erectus Skeleton, Harvard University Press.
- Walker A., Zimmerman M. R. et Leakey R. (1982), Nature (pathologie de KNM-ER 1808).
- Dean C. et collègues (2001), Nature ; Dean C. et Smith B. H. (2009), The First Humans (croissance dentaire).
- Bramble D. et Lieberman D. (2004), Nature (course d’endurance).
- Spoor F. et collègues (2007), Nature (fossiles d’Ileret).
- Bennett M. et collègues (2009), Science ; Hatala K. et collègues (2016), Scientific Reports (empreintes d’Ileret).
- Graves R. et collègues (2010) ; Ruff C. et Burgess M. L. (2015), Journal of Human Evolution (taille adulte).
- Lepre C. et collègues (2011), Nature ; Beyene Y. et collègues (2013), PNAS (premiers bifaces).
- Cerling T. et collègues (2013), PNAS (isotopes et régime).
- Schiess R. et Haeusler M. (2013) ; Meyer M. et Haeusler M. (2015), Journal of Human Evolution (colonne vertébrale).
- Hlubik S. et collègues (2017), Current Anthropology (feu à FxJj20).
- Smithsonian Institution, Human Origins Program, fiches Homo erectus et KNM-WT 15000.
Sites & fossiles majeurs
Koobi Fora, Nariokotome (Turkana Boy)